
Minggu, 28 Mei 2023
Pahlawan Pendidikan Kami


Rabu, 17 Mei 2017
Menikah, untuk apa?
January, 3th 2017, someone phoned me, He said 'Will you marry me?'
February, 25th 2017, he visited my home, along with his family members.
April, 30th 2017, wedding solemnisation (akad nikah).
May, 1st 2017, wedding reception.
SO THAT'S IT. hahaha.

photo courtesy: teh ochi
For me, marriage is like 'okay, this will be my new life'. I wasn't ready enough to face it. I think I will never ready to accept someone, a new person, into my life. But still, it is like entering the next step life of mine, just like what other people do.
My husband, fortunately, is a very good-hearted person, as he always understand me for what I am. He understands my fear, my awkwardness, my inconvenience to be next to him. Just FYI, I never had such a special relationship with any man on earth. For 30 years of my life, I focused only on my study and my family. They are enough to make me happy and full as a woman playing around on earth. haha. So literally I don't need anything else to complete me, including a husband! :p
Yet, mommy is the person who persistently force me to get married. She never give up to convince me that sooner or later I will need someone by my side. She phoned me like everyday, and sometimes get angry because I often don't listen to her chatter. Sorry for that, Mom!
HAVE I EVER LOVED A MAN?
Of course, yes I had! But, it is just a simple love. Never a serious one. At that time a marriage life, in my thought, was a very scary situation. I wasn't ready to serve someone who is neither my father nor my brother. Why would I do that? haha.
AM I FORCED TO GET MARRIED?
Well, the answer is no, a BIG no! :D
I am married because I want to, finally.
WHY DID I CHOOSE HIM?
He has a certain dream in his life. He explained it at the first time of his phone call to me. That dream is just exactly as the same as what I dream all of my life. So we are match with each other because of that reason. It is simple, yes? :D
WHY DID HE CHOOSE ME?
You better ask him! :D
WHAT DO I FEEL AFTER GETTING MARRIED?
Firstly, I feel awkward of course! haha. Because I used to live alone. But then, It feels like it's good to have someone next to me and somebody to talk with. We can spend hours to discuss about every single thing.
WHEN IT'S TIME THEN IT'S TIME
Well, he actually was my high school friend. We've never met for 12 years since 2005. My high school friends were shocked when they knew we're getting married. They said, 'Why didn't you both get marry years ago?'
Haha, that really was an interesting question. But I (and him, of course) believe that everything has its time and place (it's a line in WESTLIFE lyric, though :D). Why didn't this marriage happen years ago? Because at that time we weren't ready, both of us. Just like what Allah SWT said in the noble quran "Thus We arrange things - how well are We at arranging things." (Al-Mursalat:23)
WHAT DO WE BOTH EXPECT?
A life that full of love, respect and loyalty. We may face ups and downs in our future life. But we should always stick together and face it bravely.
THANK YOU
We both want to send our deepest gratitude to people who are meritorious for our bonding. We believe that you all are the extension of God's will. May Allah SWT bless you always.
Surabaya, 17 May 2017
February, 25th 2017, he visited my home, along with his family members.
April, 30th 2017, wedding solemnisation (akad nikah).
May, 1st 2017, wedding reception.
SO THAT'S IT. hahaha.

photo courtesy: teh ochi
For me, marriage is like 'okay, this will be my new life'. I wasn't ready enough to face it. I think I will never ready to accept someone, a new person, into my life. But still, it is like entering the next step life of mine, just like what other people do.
My husband, fortunately, is a very good-hearted person, as he always understand me for what I am. He understands my fear, my awkwardness, my inconvenience to be next to him. Just FYI, I never had such a special relationship with any man on earth. For 30 years of my life, I focused only on my study and my family. They are enough to make me happy and full as a woman playing around on earth. haha. So literally I don't need anything else to complete me, including a husband! :p
Yet, mommy is the person who persistently force me to get married. She never give up to convince me that sooner or later I will need someone by my side. She phoned me like everyday, and sometimes get angry because I often don't listen to her chatter. Sorry for that, Mom!
HAVE I EVER LOVED A MAN?
Of course, yes I had! But, it is just a simple love. Never a serious one. At that time a marriage life, in my thought, was a very scary situation. I wasn't ready to serve someone who is neither my father nor my brother. Why would I do that? haha.
AM I FORCED TO GET MARRIED?
Well, the answer is no, a BIG no! :D
I am married because I want to, finally.
WHY DID I CHOOSE HIM?
He has a certain dream in his life. He explained it at the first time of his phone call to me. That dream is just exactly as the same as what I dream all of my life. So we are match with each other because of that reason. It is simple, yes? :D
WHY DID HE CHOOSE ME?
You better ask him! :D
WHAT DO I FEEL AFTER GETTING MARRIED?
Firstly, I feel awkward of course! haha. Because I used to live alone. But then, It feels like it's good to have someone next to me and somebody to talk with. We can spend hours to discuss about every single thing.
WHEN IT'S TIME THEN IT'S TIME
Well, he actually was my high school friend. We've never met for 12 years since 2005. My high school friends were shocked when they knew we're getting married. They said, 'Why didn't you both get marry years ago?'
Haha, that really was an interesting question. But I (and him, of course) believe that everything has its time and place (it's a line in WESTLIFE lyric, though :D). Why didn't this marriage happen years ago? Because at that time we weren't ready, both of us. Just like what Allah SWT said in the noble quran "Thus We arrange things - how well are We at arranging things." (Al-Mursalat:23)
WHAT DO WE BOTH EXPECT?
A life that full of love, respect and loyalty. We may face ups and downs in our future life. But we should always stick together and face it bravely.
THANK YOU
We both want to send our deepest gratitude to people who are meritorious for our bonding. We believe that you all are the extension of God's will. May Allah SWT bless you always.
Surabaya, 17 May 2017
Sabtu, 20 Agustus 2016
Lowongan Dosen Tetap Non PNS di Universitas Airlangga 2016
Universitas Airlangga (UNAIR) memberikan kesempatan bagi Warga Negara Indonesia untuk menjadi Dosen Tetap Non PNS di lingkungan Universitas Airlangga dengan persyaratan dan ketentuan sebagaimana lampiran Pengumuman Rektor Nomor 1411/UN3/KP/2016 tanggal 18 Agustus 2016 tentang Seleksi Penerimaan Dosen Tetap Non PNS di lingkungan Universitas Airlangga tahun 2016.
Untuk informasi lebih lengkap bisa ke laman http://sdm.unair.ac.id/seleksi-penerimaan-dosen-tetap-non-pns-di-lingkungan-universitas-airlangga-tahun-2016/
Semoga bermanfaat! :)
Untuk informasi lebih lengkap bisa ke laman http://sdm.unair.ac.id/seleksi-penerimaan-dosen-tetap-non-pns-di-lingkungan-universitas-airlangga-tahun-2016/
Semoga bermanfaat! :)
Label:
2016,
airlangga university,
job vacancy,
lecturer

Selasa, 26 April 2016
Teaching Animal Physiology Class with a Role Play Method
I did remember when my friend, Prita once told me about a role play method. She is a very creative and innovative lecturer, so I bet she has already applied all the teaching methods she'd known. Haha. But one thing, she is a social science lecturer, which in my opinion, this social science lessons have much more flexibility than a natural science.
So at that time, it felt so impossible for me to teach my students using this kind of technique. But then everything has changed when this semester I have to teach animal physiology. This lessons is quite interesting because students can easily apply the knowledges to theirselves, because studying animals also means studying human body.
Then this is it, I asked my students to role play a certain animal physiology system with their groups. They looked enjoy the discussion very much to prepare the role playing. The role play activity was also quite enjoyable. They played something and got the knowledge at the same time. That's a win win solution to the students and also the lecturer, so the students will have a deeper understanding, and the lecturer doesn't need to explain the details of the concept. After the role play, there was a discussion in the class, aiming to give feed back to the role play, whether it's scientifically correct or not. In this discussion, all groups must be involved.
I want to put the videos here, unfortunately I forget where I put the videos. Sorry for that. However, still in my opinion, not every lesson in term of natural science, can be delivered by using this method. For example, to teach plant stucture and morphology, the application of plant determination is much more needed in order to make the student understand.
Ok, that's all for today. Happy Wednesday^^!
So at that time, it felt so impossible for me to teach my students using this kind of technique. But then everything has changed when this semester I have to teach animal physiology. This lessons is quite interesting because students can easily apply the knowledges to theirselves, because studying animals also means studying human body.
Then this is it, I asked my students to role play a certain animal physiology system with their groups. They looked enjoy the discussion very much to prepare the role playing. The role play activity was also quite enjoyable. They played something and got the knowledge at the same time. That's a win win solution to the students and also the lecturer, so the students will have a deeper understanding, and the lecturer doesn't need to explain the details of the concept. After the role play, there was a discussion in the class, aiming to give feed back to the role play, whether it's scientifically correct or not. In this discussion, all groups must be involved.
I want to put the videos here, unfortunately I forget where I put the videos. Sorry for that. However, still in my opinion, not every lesson in term of natural science, can be delivered by using this method. For example, to teach plant stucture and morphology, the application of plant determination is much more needed in order to make the student understand.
Ok, that's all for today. Happy Wednesday^^!
Label:
animal physiology,
role play,
teaching method
Senin, 29 Februari 2016
Applying Online Quiz in The Classroom

Yesterday I tried to apply online quiz inside the class for the first time. Before, I tried it to students outside the classroom, which mean I could not check whether they did it by theirselves or not.
I have 50 students in my class, I divided them into 8 groups. The day before, I told them all to prepare for the quiz. They were not informed that they would do it with group and also did not know that it would be an online quiz. However, I did inform them to sit down next to their friends in a same group.
When I came to the class, they had already in that position with their group. Then I told them to choose a friend whose the account will be used to do the online quiz. So they chose a friend among the group members. They did the quiz together but they were restricted to open the notebooks and other resources. I gave them 20 minutes to do 12 multiple choice questions. After they submitted their quiz, the marks are quiet interesting. It varied between 4.82 to 10. I was happy because some of them (only a group, to be exact) got the maximum point. But in other way, it was also a homework for me to solve the problem of a group of students that got only 4.82 point. If you did it together with your friends, how came you got a low mark?
However, in spite there was an obstacle on the internet connection, applying online quiz in the classroom have some advantages:
1. Students can discuss the problem with their group. In this way, there is a big probability for them to share the informations.
2. They actively participated in the class. I observed that there was no single student doing nothing in the class. All of them involved in the class discussion.
So, that is all about online quiz inside the classroom. Thank you for reading my note :)
Label:
classroom management,
online quiz
How Do You Write an Email

Hello there,
Saya merasa miris dengan keadaan akhir-akhir ini, dimana etika sudah tidak lagi dipermasalahkan karena pergeseran budaya. Budaya apakah yang dimaksud? Budaya bersosial media sudah marak sehingga beberapa etika yang seharusnya terpenuhi menjadi dilanggar dengan sangat amat biasa sekali tanpa ada rasa dosa dan tanpa hukuman sosial yang wajar.
Salah satu dampaknya adalah pada etika penulisan email. Sering sekali terjadi kepada saya pribadi, email yang tidak disertai isi email, bahkan tanpa subyek/judul email. Biasanya sih mahasiswa yang melakukan ini, meskipun ada beberapa juga yang bukan :D. Hal semacam ini tidak pernah terjadi di jaman sebelum ada facebook, WA, Ktalk, Line dan BBM.
Jadi, temans, ternyata, mengirim email itu ada etikanya. In case temans tidak tahu, akan saya beri tahu ya. Berikut hal-hal yang wajib ada di setiap email:
1. Subyek/ Judul Email, berisi gambaran besar isi email, misalnya jika saya ingin mengirim daftar nilai fisiologi tumbuhan ke rekan saya, akan saya tulis di subyek : Nilai Fisiologi Tumbuhan.
2. Salam pembuka, berisi salam seperti Halo, Hai (jika informal) dan Dengan hormat, Selamat pagi/siang/sore/malam (jika formal). Informal maksudnya penerima email adalah orang yang dekat dengan kita, seperti teman atau saudara. Sedangkan formal artinya penerima email itu adalah rekan kerja atau atasan kita atau orang yang kita hormati.
3. Isi email, berisi maksud dikirimnya email kita. Isi email juga bisa informal dan formal, tetapi harus tetap memperhatikan adab sopan-santun.
4. Salam penutup, berisi salam seperti Salam, Salam hormat, dan sebagainya, sebagai tanda untuk mengakhiri email kita.
5. Nama pengirim email. Biasanya simply kita atur di 'signature' sehingga kita tidak perlu menulis berulang-ulang.
Oh iya, khusus untuk temans yang merencanakan mengirim email kepada calon supervisor (lagi cari beasiswa), tolong buatlah alamat email yang sesuai dengan nama kalian, misalnya karena nama saya wina, maka email saya winasavitri@gmail.com. Jangan membuat alamat email dengan nama samaran seperti badboy@blablabla.com dan yang semacam itu. Alamat email yang demikian, jika mengirim email aplikasi beasiswa, akan besar kemungkinannya tidak dibaca oleh calon supervisor, karena dianggap sebagai spam.
Demikian temans tentang adab menulis email, semoga ada manfaatnya. :)
Senin, 15 Februari 2016
Lowongan Kerja Dosen Tetap
Dear all,
Fakultas Teknobiologi Universitas Surabaya membuka lowongan untuk posisi dosen tetap bidang teknologi pangan/ teknologi hasil pertanian/ nutrisi dan gizi dengan kualifikasi sebagai berikut:
1. Warga Negara Indonesia.
2. Usia maksimum 30 tahun (bergelar S2) dan maksimal 40 tahun (bergelar S3).
3. Pendidikan Minimal S2 dari PT dalam/luar negeri yang bereputasi.
4. IPK S1 dan S2 minimal 3,5 pada skala 0-4.
5. Bersedia bekerja penuh waktu (full time).
6. Menguasa Bahasa Inggris yang dibuktikan dengan nilai sertifikat TOEFL (minimal 525) atau IELTS (minimal 6).
7. Memiliki pengalaman riset/pengajaran/asistensi yang dibuktikan dengan sertifikat atau surat keterangan dari lembaga terkait.
Batas akhir aplikasi adalah 11 Maret 2016. Surat lamaran, CV, bukti dokumen dapat dikirim ke Dekan Fakultas Teknobiologi Ubaya, Gedung FG Lantai 2, Jl. Raya Kalirungkut Surabaya 60293.
Dapat pula dikirimkan melalui email di biotek@unit.ubaya.ac.id
Demikian info ini, semoga bermanfaat!
Fakultas Teknobiologi Universitas Surabaya membuka lowongan untuk posisi dosen tetap bidang teknologi pangan/ teknologi hasil pertanian/ nutrisi dan gizi dengan kualifikasi sebagai berikut:
1. Warga Negara Indonesia.
2. Usia maksimum 30 tahun (bergelar S2) dan maksimal 40 tahun (bergelar S3).
3. Pendidikan Minimal S2 dari PT dalam/luar negeri yang bereputasi.
4. IPK S1 dan S2 minimal 3,5 pada skala 0-4.
5. Bersedia bekerja penuh waktu (full time).
6. Menguasa Bahasa Inggris yang dibuktikan dengan nilai sertifikat TOEFL (minimal 525) atau IELTS (minimal 6).
7. Memiliki pengalaman riset/pengajaran/asistensi yang dibuktikan dengan sertifikat atau surat keterangan dari lembaga terkait.
Batas akhir aplikasi adalah 11 Maret 2016. Surat lamaran, CV, bukti dokumen dapat dikirim ke Dekan Fakultas Teknobiologi Ubaya, Gedung FG Lantai 2, Jl. Raya Kalirungkut Surabaya 60293.
Dapat pula dikirimkan melalui email di biotek@unit.ubaya.ac.id
Demikian info ini, semoga bermanfaat!
Label:
dosen,
job vacancy,
lecturer,
lowongan kerja,
teknobiologi
Rabu, 03 Februari 2016
How I Fall in Love with Plant Tissue Culture
Saya bertemu dengan kultur jaringan tanaman pada saat kelas 2 SMA. Karena hobi sekali menghabiskan waktu istirahat di perpustakaan sekolah, saya sering tidak sengaja menyaksikan tayangan-tayangan video yang diputar di perpustakaan. Salah satunya adalah tentang teknik kultur jaringan tanaman. Video itu tidak hanya diputar sekali, sempat berkali-kali secara tidak sengaja saya menontonnya.
Di dalam video itu tampak beberapa siswa dengan memakai jas lab, memindahkan bagian tanaman di dalam suatu meja kerja yang tertutup - later on I know, that was Laminar Air Flow :D. Ada pula video yang menampilkan tanaman utuh di dalam botol kaca yang tertutup rapat. Saya benar-benar terkesima, bagaimana mungkin tanaman itu bisa hidup di dalam sana?
Setelah itu saya menggali informasi tentang metode kultur jaringan ini. Ternyata banyak dipelajari jika kita masuk ke jurusan pertanian atau biologi. Saya sempat naksir IPB loh, lalu mengutarakan keinginan saya untuk masuk Biologi IPB, tetapi ditolak mentah-mentah oleh Bapak. Alasannya klise, "terlalu jauh, kamu perempuan".
Akhirnya nasib saya berakhir di Biologi Unair. Sebenarnya saya ingin mengambil skripsi di bidang kultur jaringan waktu itu. Tetapi apalah daya, laboratoriumnya -waktu itu- terbatas dan jumlah peminatnya banyak sekali. Melihat situasi itu, saya pesimis bisa lulus 4 tahun. Akhirnya takdir mengantarkan saya kepada Bu Jun, salah satu dosen tanaman yang sedang mengerjakan proyek penelitian. Meskipun di awal saya harus mengeksplorasi lumut hati dan mengkarakterisasinya, proyek ini sebenarnya diarahkan ke uji aktivitas ekstrak kasar lumut hati. Organisme yang digunakan untuk uji aktivitasnya adalah bakteri. Jadi, saya tenggelam di Lab Mikrobiologi. Skripsi saya, ya skripsi mikrobiologi. Haha..
Tahun 2009 saya mengajar di sebuah sekolah tinggi swasta dengan degree yang masih S1. Maka saya berkeinginan untuk lanjut S2 di universitas negeri yang dekat dengan lokasi kerja saya. Eh, ternyata, sebelum saya benar-benar mendaftar di sana, Widhi, teman seangkatan saya, memberi info tentang lowongan S2 di Korea. Singkat cerita (sebenarnya ceritanya panjaaaaang..hahaha), saya berangkat ke Korea. Profesor saya, Prof Kim Chang Kil ternyata adalah seorang ahli di bidang kultur jaringan tanaman! How lucky I am. Maka saya bahagia sekali karena apa yang pernah saya cita-citakan dulu, ternyata kejadian. Alhamdulillaah.. Bahkan sekarang, di tempat kerja saya yang baru, saya masih melakukan hal yang sama.
Inti dari cerita ini sebenarnya adalah apa-apa yang kita ingini, mungkin belum bisa kita peroleh di saat itu, saat yang kita mau. Tetapi percayalah, suatu saat, kalau Tuhan berkehendak, maka jadilah. Life is always that simple :).
****
Lalu mengapa saya menulis kisah ini?
Sejak hari Senin kemarin, saya menguji skripsi 7 orang mahasiswa. Di akhir sidang, kami selalu mendengarkan kesan pesan mahasiswa yang telah menyelesaikan sidang skripsinya itu. Di antara mereka, bahkan ada beberapa yang sebenarnya tidak suka dengan apa yang mereka pelajari di sini, karena simply bukan passion mereka. Tetapi hebatnya mereka tetap bertahan dengan segenap perjuangan, hingga lulus! Saya rasa orang-orang yang begini termasuk dalam tipe orang yang adaptif dan cerdas. Salut untuk mereka. Ah~ selalu bahagia menjumpai orang-orang yang yakin bahwa masa depannya akan lebih baik dan selalu berpikir positif. Semoga tercapai apa yang dicita-citakan ya, Nak! :)
Di dalam video itu tampak beberapa siswa dengan memakai jas lab, memindahkan bagian tanaman di dalam suatu meja kerja yang tertutup - later on I know, that was Laminar Air Flow :D. Ada pula video yang menampilkan tanaman utuh di dalam botol kaca yang tertutup rapat. Saya benar-benar terkesima, bagaimana mungkin tanaman itu bisa hidup di dalam sana?
Setelah itu saya menggali informasi tentang metode kultur jaringan ini. Ternyata banyak dipelajari jika kita masuk ke jurusan pertanian atau biologi. Saya sempat naksir IPB loh, lalu mengutarakan keinginan saya untuk masuk Biologi IPB, tetapi ditolak mentah-mentah oleh Bapak. Alasannya klise, "terlalu jauh, kamu perempuan".
Akhirnya nasib saya berakhir di Biologi Unair. Sebenarnya saya ingin mengambil skripsi di bidang kultur jaringan waktu itu. Tetapi apalah daya, laboratoriumnya -waktu itu- terbatas dan jumlah peminatnya banyak sekali. Melihat situasi itu, saya pesimis bisa lulus 4 tahun. Akhirnya takdir mengantarkan saya kepada Bu Jun, salah satu dosen tanaman yang sedang mengerjakan proyek penelitian. Meskipun di awal saya harus mengeksplorasi lumut hati dan mengkarakterisasinya, proyek ini sebenarnya diarahkan ke uji aktivitas ekstrak kasar lumut hati. Organisme yang digunakan untuk uji aktivitasnya adalah bakteri. Jadi, saya tenggelam di Lab Mikrobiologi. Skripsi saya, ya skripsi mikrobiologi. Haha..
Tahun 2009 saya mengajar di sebuah sekolah tinggi swasta dengan degree yang masih S1. Maka saya berkeinginan untuk lanjut S2 di universitas negeri yang dekat dengan lokasi kerja saya. Eh, ternyata, sebelum saya benar-benar mendaftar di sana, Widhi, teman seangkatan saya, memberi info tentang lowongan S2 di Korea. Singkat cerita (sebenarnya ceritanya panjaaaaang..hahaha), saya berangkat ke Korea. Profesor saya, Prof Kim Chang Kil ternyata adalah seorang ahli di bidang kultur jaringan tanaman! How lucky I am. Maka saya bahagia sekali karena apa yang pernah saya cita-citakan dulu, ternyata kejadian. Alhamdulillaah.. Bahkan sekarang, di tempat kerja saya yang baru, saya masih melakukan hal yang sama.
Inti dari cerita ini sebenarnya adalah apa-apa yang kita ingini, mungkin belum bisa kita peroleh di saat itu, saat yang kita mau. Tetapi percayalah, suatu saat, kalau Tuhan berkehendak, maka jadilah. Life is always that simple :).
****
Lalu mengapa saya menulis kisah ini?
Sejak hari Senin kemarin, saya menguji skripsi 7 orang mahasiswa. Di akhir sidang, kami selalu mendengarkan kesan pesan mahasiswa yang telah menyelesaikan sidang skripsinya itu. Di antara mereka, bahkan ada beberapa yang sebenarnya tidak suka dengan apa yang mereka pelajari di sini, karena simply bukan passion mereka. Tetapi hebatnya mereka tetap bertahan dengan segenap perjuangan, hingga lulus! Saya rasa orang-orang yang begini termasuk dalam tipe orang yang adaptif dan cerdas. Salut untuk mereka. Ah~ selalu bahagia menjumpai orang-orang yang yakin bahwa masa depannya akan lebih baik dan selalu berpikir positif. Semoga tercapai apa yang dicita-citakan ya, Nak! :)
Kamis, 07 Januari 2016
Asal Usul dan Sejarah Tomat
Oleh W Dale Cramer,dkk.
Genetic Improvement of Tomato, Springer (2012)
Tomat berasal dari Dunia Baru, ketika zona Andean sepertinya menjadi pusat tomat liar. Namun, domestikasi tomat pertama kali dilakukan di Meksiko. Nenek moyang tomat yang paling memungkinkan adalah tomat ceri (Lycopersicon esculentum var. cerasiforme). Berdasarkan Rick (1979a), spesies Lycopersicon berevolusi melalui substitusi gen. Fakta ini berdasarkan pada studi biosistematik Lycopersicon dan spesies yang memiliki hubungan kekerabatan yang dekat yaitu Solanum.
Kultivar-kultivar yang diintroduksi dari Amerika Latin umumnya memiliki stigma yang tidak tersembunyi, sehingga memfasilitasi polinasi silang. Pada tahap selanjutnya, tanaman yang memiliki jumlah buah yang tinggi dan dengan stilus yang pendek pada mulut tabung anter, adalah yang terpilih. Akhir-akhir ini, kultivar dengan stilus yang jauh lebih pendek diketahui dapat melakukan polinasi sendiri yang lebih tinggi frekuensinya.
Catatan pertama tomat di Dunia Lama adalah deskripsi yang dipublikasikan oleh Pier Andrea Mattioli, seorang berkebangsaan Itali di tahun 1554. Sebelum tahun 1800, kultivar Eropa diintroduksi ke Amerika Serikat. Thomas Jefferson di tahun 1781 mendeskripsikan penanaman tomat di Virginia. Kemudian, tomat dibawa ke Philadelpia oleh pengungsi Perancis di tahun 1789 dan ke Massachusetts di tahun 1802 oleh pelukis Italia. Sejak tahun 1800, tomat ditumbuhkan di sebagian besar bagian bumi (Boswell, 1949). Nama ‘tomato’ kemungkinan berasal dari ‘tomatl’ dari lidah orang Nahua di Meksiko.
***
Genetic Improvement of Tomato, Springer (2012)
Tomat berasal dari Dunia Baru, ketika zona Andean sepertinya menjadi pusat tomat liar. Namun, domestikasi tomat pertama kali dilakukan di Meksiko. Nenek moyang tomat yang paling memungkinkan adalah tomat ceri (Lycopersicon esculentum var. cerasiforme). Berdasarkan Rick (1979a), spesies Lycopersicon berevolusi melalui substitusi gen. Fakta ini berdasarkan pada studi biosistematik Lycopersicon dan spesies yang memiliki hubungan kekerabatan yang dekat yaitu Solanum.
Kultivar-kultivar yang diintroduksi dari Amerika Latin umumnya memiliki stigma yang tidak tersembunyi, sehingga memfasilitasi polinasi silang. Pada tahap selanjutnya, tanaman yang memiliki jumlah buah yang tinggi dan dengan stilus yang pendek pada mulut tabung anter, adalah yang terpilih. Akhir-akhir ini, kultivar dengan stilus yang jauh lebih pendek diketahui dapat melakukan polinasi sendiri yang lebih tinggi frekuensinya.
Catatan pertama tomat di Dunia Lama adalah deskripsi yang dipublikasikan oleh Pier Andrea Mattioli, seorang berkebangsaan Itali di tahun 1554. Sebelum tahun 1800, kultivar Eropa diintroduksi ke Amerika Serikat. Thomas Jefferson di tahun 1781 mendeskripsikan penanaman tomat di Virginia. Kemudian, tomat dibawa ke Philadelpia oleh pengungsi Perancis di tahun 1789 dan ke Massachusetts di tahun 1802 oleh pelukis Italia. Sejak tahun 1800, tomat ditumbuhkan di sebagian besar bagian bumi (Boswell, 1949). Nama ‘tomato’ kemungkinan berasal dari ‘tomatl’ dari lidah orang Nahua di Meksiko.
***
Label:
cultivation,
history,
hortikultura,
tomato
Senin, 14 Desember 2015
Menelusuri Kultivasi Pisang Kuno di Papua Nugini
Proyek ini dilakukan di Centre for Geoarchaeology and Palaeoenvironmental Research, School of Environmental Science and Management, Southern Cross University, Lismore, NSW dan disupervisi oleh C Lentfer and W Boyd.
Beberapa pisang liar adalah endemik di Papua Nugini. Diantaranya adalah yang termasuk dalam spesies Eumusa dan Australimusa, pisang raksasa yang hidup di dataran tinggi yaitu Musa ingens, dan pisang yang toleran terhadap kekeringan yaitu Ensete glaucum (Argent 1976, Simmonds 1956). Selain itu ada ratusan varietas pisang yang tumbuh di kebun, yaitu varietas triploid yang dikembangkan dari spesies Eumusa, ratusan varietas Eumusa diploid, serta hasil persilangan Eumusa/Australimusa yang menghasilkan anakan yang poliploid, dan juga Australimusa tipe Fe'i (MacDaniels 1947, Sharrock 1988,1989, Daniells 2001). Oleh karena itu, mengingat pentingnya pisang di kedua wilayah di Papua Nugini (secara alami dan budidaya), mungkin tidak terlalu mengherankan bahwa ada semakin banyak bukti yang mendukung budidaya awalnya (Bowdery 1999, Wilson1985). Memang bukti baru berkembang dari studi arkeologi dan palaeoenvironmetal di Kuk Swamp di Provinsi Western Highland, menunjukkan sejarah panjang kultivasi pisang di Papua Nugini setidaknya sejak 7.000 tahun yang lalu dan kemungkinan 10.000 tahun yang lalu (Denham et al. 2003). Ini adalah catatan terpanjang kultivasi pisang di seluruh dunia. Selain itu, beberapa titik arkeologi seperti Watom Island di East New Britain memiliki bukti tambahan mengenai kultivasi pisang kira-kira 2.300 tahun yang lalu, yaitu pada saat manusia pembuat puisi Lapita hidup di pulau itu. Mengingat pentingnya penemuan ini, terutama sehubungan dengan asal-usul domestifikasi tanaman dan agrikultura, penting untuk mencoba dan mencari tahu jenis pisang apa yang ditanam manusia di masa lalu dan juga menentukan apakah pisang-pisang ini merupakan hasil kultivasi ataukah tumbuh liar.
Pitolit (deposit silika di dalam tanaman) adalah cara yang paling ideal untuk mencari tahu tentang prasejarah pisang dan menelusuri pola persebarannya. Studi pendahuluan menunjukkan bahwa ada perbedaan antara pitolit dari beberapa jenis pisang. Tetapi perlu studi lanjutan dengan menggunakan material moderen tambahan untuk memastikan hal ini. Tujuan dari proyek ini adalah untuk mengoleksi material lain sebagai referensi material moderen yang dibutuhkan untuk memfasilitasi studi selanjutnya. Jeff Daniells dari Queensland Department of Primary Industries membantu untuk menyusun Musalogue (katalog pisang) untuk ‘International Network for the Improvement of Banana and Plantain’ dan diundang oleh Lentfer untuk berpartisipasi dalam studi lapangan. Selain membantu identifikasi pisang, beliau juga dapat menentukan beberapa penyakit pisang dan mengetahu nutrisi pisang, mendokumentasikan insiden penyakit dan mengoleksi anakan pisang yang memiliki potensi tahan hama dan penyakit atau varietas yang kaya akan vitamin.
Dengan dukungan dana yang diberi dari Pacific Biological Foundation, studi lapangan dimulai pada Agustus 2002. Lebih dari 100 pencapaian baru dari pisang liar dan hasil kultivasi diperoleh dari daerah geografik yang luas, termasuk West New Britain, East New Britain, New Ireland, Western Highlands, East Sepik, Madang and Milne Bay. Beberapa daerah distribusi baru untuk kultivar-kultivar menarik telah diperoleh. Bantuan juga diperoleh dari staf Papua New Guinea Government Institutions dan petani desa.
Material tanaman yang dikoleksi, kini diletakkan di Quarantine Laboratory di School of Environmental Science and Management, Southern Cross University, Lismore, NSW, Australia. Analisis kumpulan pitolit yang diekstraksi dari sampel pisang tambahan sangat berguna untuk mengklarifikasi beberapa masalah palaeoenvironmental yang berhubungan dengan studi arkeologi. Setelah pemeriksaan yang lebih ekstensif terhadap pitolit di dalam biji pisang, perbedaan antara Eumusa, Australimusa, Ensete dan Musa ingens dapat dikonfirmasi. Diketahui pula bahwa Musa ingens yang ditumbuhkan di Kuk bersama-sama dengan Eumusa sekitar 10.000 tahun yang lalu. Mengingat sudah jelasnya keberadaan Eumusa di Kuk dan bukti-bukti yang nyata dari studi arkeologi dan genetik lainnya, sekarang ada bukti yang sangat kuat untuk agrikultur awal di daerah itu (Denham et al. 2003). Selain itu kultivasi Eumusa di Watom telah terverifikasi (Lentfer and Green in press).
Saat ini masih banyak analisis morfometrik pitolit pisang yang harus diselesaikan dan hasil dari analisis ini memiliki potensi untuk dibuang bahkan dengan tambahan informasi yang lebih banyak dari masalah kultivasi dan domestikasi pisang di Papua Nugini dan wilayah sekitarnya. Memang dengan ditemukannya situs-situs mikrofosil pisang prospeknya sangat menjajikan di masa yang akan datang.
 Gambar 1. Klasifikasi Musaceae
 Gambar 2. Ensete glaucum
 Gambar 3. Musa boman dari subgenus Australimusa
 Gambar 4. Musa acuminata dari subgenus Eumusa
 Gambar 5. Pisang raksasa yaitu Musa ingens dari subgenus Ingentimusa
***
Sumber informasi:
http://apscience.org.au/projects/PBF_02_3/pbf_02_3.htm
Sumber gambar:
1. http://rfcarchives.org.au/Next/FruitImages/WildBananaChart9-94.png
2. http://botany.si.edu/zingiberales/images/Musaceae/ensete_glauca.jpg
3. http://www.crop-diversity.org/mgis/sites/crop-diversity.org.mgis/files/pictures/01BEL0841026_01FRA144_1.jpg?width=512&height=400&inline=true#picture-01BEL0841026-01FRA144-1-jpg
4. http://www.kew.org/files/styles/content_featured/public/assets/KPPCONT_085168.jpg?itok=NMXT12zQ
5. http://myjunglegarden.com/wp-content/uploads/2012/07/Musa-ingens.jpg
Beberapa pisang liar adalah endemik di Papua Nugini. Diantaranya adalah yang termasuk dalam spesies Eumusa dan Australimusa, pisang raksasa yang hidup di dataran tinggi yaitu Musa ingens, dan pisang yang toleran terhadap kekeringan yaitu Ensete glaucum (Argent 1976, Simmonds 1956). Selain itu ada ratusan varietas pisang yang tumbuh di kebun, yaitu varietas triploid yang dikembangkan dari spesies Eumusa, ratusan varietas Eumusa diploid, serta hasil persilangan Eumusa/Australimusa yang menghasilkan anakan yang poliploid, dan juga Australimusa tipe Fe'i (MacDaniels 1947, Sharrock 1988,1989, Daniells 2001). Oleh karena itu, mengingat pentingnya pisang di kedua wilayah di Papua Nugini (secara alami dan budidaya), mungkin tidak terlalu mengherankan bahwa ada semakin banyak bukti yang mendukung budidaya awalnya (Bowdery 1999, Wilson1985). Memang bukti baru berkembang dari studi arkeologi dan palaeoenvironmetal di Kuk Swamp di Provinsi Western Highland, menunjukkan sejarah panjang kultivasi pisang di Papua Nugini setidaknya sejak 7.000 tahun yang lalu dan kemungkinan 10.000 tahun yang lalu (Denham et al. 2003). Ini adalah catatan terpanjang kultivasi pisang di seluruh dunia. Selain itu, beberapa titik arkeologi seperti Watom Island di East New Britain memiliki bukti tambahan mengenai kultivasi pisang kira-kira 2.300 tahun yang lalu, yaitu pada saat manusia pembuat puisi Lapita hidup di pulau itu. Mengingat pentingnya penemuan ini, terutama sehubungan dengan asal-usul domestifikasi tanaman dan agrikultura, penting untuk mencoba dan mencari tahu jenis pisang apa yang ditanam manusia di masa lalu dan juga menentukan apakah pisang-pisang ini merupakan hasil kultivasi ataukah tumbuh liar.
Pitolit (deposit silika di dalam tanaman) adalah cara yang paling ideal untuk mencari tahu tentang prasejarah pisang dan menelusuri pola persebarannya. Studi pendahuluan menunjukkan bahwa ada perbedaan antara pitolit dari beberapa jenis pisang. Tetapi perlu studi lanjutan dengan menggunakan material moderen tambahan untuk memastikan hal ini. Tujuan dari proyek ini adalah untuk mengoleksi material lain sebagai referensi material moderen yang dibutuhkan untuk memfasilitasi studi selanjutnya. Jeff Daniells dari Queensland Department of Primary Industries membantu untuk menyusun Musalogue (katalog pisang) untuk ‘International Network for the Improvement of Banana and Plantain’ dan diundang oleh Lentfer untuk berpartisipasi dalam studi lapangan. Selain membantu identifikasi pisang, beliau juga dapat menentukan beberapa penyakit pisang dan mengetahu nutrisi pisang, mendokumentasikan insiden penyakit dan mengoleksi anakan pisang yang memiliki potensi tahan hama dan penyakit atau varietas yang kaya akan vitamin.
Dengan dukungan dana yang diberi dari Pacific Biological Foundation, studi lapangan dimulai pada Agustus 2002. Lebih dari 100 pencapaian baru dari pisang liar dan hasil kultivasi diperoleh dari daerah geografik yang luas, termasuk West New Britain, East New Britain, New Ireland, Western Highlands, East Sepik, Madang and Milne Bay. Beberapa daerah distribusi baru untuk kultivar-kultivar menarik telah diperoleh. Bantuan juga diperoleh dari staf Papua New Guinea Government Institutions dan petani desa.
Material tanaman yang dikoleksi, kini diletakkan di Quarantine Laboratory di School of Environmental Science and Management, Southern Cross University, Lismore, NSW, Australia. Analisis kumpulan pitolit yang diekstraksi dari sampel pisang tambahan sangat berguna untuk mengklarifikasi beberapa masalah palaeoenvironmental yang berhubungan dengan studi arkeologi. Setelah pemeriksaan yang lebih ekstensif terhadap pitolit di dalam biji pisang, perbedaan antara Eumusa, Australimusa, Ensete dan Musa ingens dapat dikonfirmasi. Diketahui pula bahwa Musa ingens yang ditumbuhkan di Kuk bersama-sama dengan Eumusa sekitar 10.000 tahun yang lalu. Mengingat sudah jelasnya keberadaan Eumusa di Kuk dan bukti-bukti yang nyata dari studi arkeologi dan genetik lainnya, sekarang ada bukti yang sangat kuat untuk agrikultur awal di daerah itu (Denham et al. 2003). Selain itu kultivasi Eumusa di Watom telah terverifikasi (Lentfer and Green in press).
Saat ini masih banyak analisis morfometrik pitolit pisang yang harus diselesaikan dan hasil dari analisis ini memiliki potensi untuk dibuang bahkan dengan tambahan informasi yang lebih banyak dari masalah kultivasi dan domestikasi pisang di Papua Nugini dan wilayah sekitarnya. Memang dengan ditemukannya situs-situs mikrofosil pisang prospeknya sangat menjajikan di masa yang akan datang.


***
Sumber informasi:
http://apscience.org.au/projects/PBF_02_3/pbf_02_3.htm
Sumber gambar:
1. http://rfcarchives.org.au/Next/FruitImages/WildBananaChart9-94.png
2. http://botany.si.edu/zingiberales/images/Musaceae/ensete_glauca.jpg
3. http://www.crop-diversity.org/mgis/sites/crop-diversity.org.mgis/files/pictures/01BEL0841026_01FRA144_1.jpg?width=512&height=400&inline=true#picture-01BEL0841026-01FRA144-1-jpg
4. http://www.kew.org/files/styles/content_featured/public/assets/KPPCONT_085168.jpg?itok=NMXT12zQ
5. http://myjunglegarden.com/wp-content/uploads/2012/07/Musa-ingens.jpg
Label:
banana,
biodiversity,
Musaceae
Minggu, 13 Desember 2015
Metaloenzim (II)-End
REGULASI DAN KONTROL
Penghambatan Metaloenzim
Kira-kira sepertiga dari semua enzim memiliki logam sebagai bagian dari strukturnya, membutuhkan logam yang ditambahkan untuk aktivitas atau selanjutnya akan diaktivasi oleh logam. Dalam enzim dimana sebuah logam telah dibangun menjadi struktur molekul enzim, logamnya tidak bisa dipisahkan tanpa menghancurkan strukturnya. Contoh enzim tersebut adalah metaloflavoprotein, sitokrom dan feredoksin. Di dalam enzim dimana logamnya ditambahkan untuk aktivitasnya, logamnya bereaksi secara reversibel dengan protein untuk membentuk kompleks protein-logam yang merupakan katalis aktif. Dalam banyak contoh, kompleks tersebut menunjukkan sebuah konformasi spesifik, katalitik aktif dari protein, sehingga salah satu fungsi logam adalah untuk menstabilkan konformasi tersebut.
Karena pengelompokannya, metaloenzim sangat besar dan luas, dan akan hampir tidak mungkin untuk menjelaskan bagaimana semuanya dapat dikontrol dan diatur. Karena hal tersebut, penting untuk menyebutkan bagaimana fungsi penting logam di dalam enzim dapat diganggu sehingga dapat dihambat. Logam yang menyerupai proton (H+) karena bersifat elektrofil dan dapat menangkap sebuah pasangan elektron untuk membentuk ikatan kimia. Pada saat proses pengikatan tersebut, logam bisa bertindak sebagai asam umum untuk bereaksi dengan ligan anion dan netral. Ciri logam ini berguna dalam fungsi dan struktur enzimatik, tetapi untuk membentuk enzim tergantung pada pH. Perubahan pH dapat mengganggu aliran elektron yang difasilitasi oleh logam sehingga dapat menghambat keseluruhan efektivitas metaloenzim.
Selain itu, karena kemampuan variabilitas yang tidak dapat dipisahkan dari logam untuk bereaksi dengan lebih sari satu ligan, logam adalah bagian dari sisi aktif dalam banyak metaloenzim. Inhibitor kompetitif dalam keadaan analog-transisi adalah senyawa yang dipercaya menyerupai substrat dalam keadaan transisi. Agar efektif, keadaan analog-transisi harus tidak mudah terpengaruh pada reaksi yang diaktivasi oleh enzim. Inhibisi kompetitif, melalui keadaan analog-transisi, telah ditunjukkan di dalam reaksi Carboxypeptidase A oleh molekul fosfor yang dibuat oleh Paul Bartlett dan dapat dilihat pada gambar di bawah ini.

Akan berfungsi baik dalam penghambatan CPA karena atom fosfor dengan ikatan oksigen dan nitrogen, menyerupai atom karbon tetrahedral dalam dua intermediet, dan keadaan transisi dari 3 tahapan.
Regulasi Metaloenzim Melalui Diet
Seperti yang telah dijelaskan, logam mempunyai peranan penting dalam aktivitas sejumlah besar molekul biologi. Sumber seng pada manusia hampir seluruhnya berasal dari diet dan tanpa penyerapan logam seperti seng dalam dietnya, maka produksi dan aktivitas banyak enzim penting akan terhambat. Di antara enzom yang tidak akan diproduksi oleh tubuh karena ketidakadaan seng dalam tubuh adalah karbonik anhidrase, karboksipeptidase, alkalin fosfatase asam laktat dan alkohol dehidrogenase.
Asupan seng yang direkomendasikan setiap harinya adalah 15mg, dan 20mg serta 25mg selama kehamilan dan menyusui. Rata-rata manusia dewasa menyerap 12-20mg seng per hari. Defisiensi seng akan menyebabkan gangguan pertumbuhan, pembesaran hati dan limpa, serta ketidaknormalan organ kelamin dan munculnya sifat seks sekunder. Selain kekurangan asupan seng, defisiensi seng dapat pula karena ekskresi seng melalui keringat atau karena kehilangan darah jika terjadi infeksi parasit.
Ada bukti yang menunjukkan bahwa seng memainkan fungsi dalam pemanfaatan dan biosintesis protein. Penambahan sejumlah kecil seng ke dalam makanan yang mengandung protein sayur yang kurang optimal menyebabkan peningkatan penggunaan protein dan peningkatan pertumbuhan. Cacat ini bisa diakibatkan oleh kesalahan sintesis protein. Seng menghambat enzim ribonuklease. Sehingga dalam defisiensi seng, perusakan RNA yang melampaui batas dapat terjadi. Hal ini menjelaskan bahwa asupan logam tidak hanya penting untuk produksi enzim penting, tetapi juga untuk penghambatan enzim yang lain.
Sumber:
http://www.cs.stedwards.edu/chem/Chemistry/CHEM43/CHEM43/Metallo/Metallo.HTML#funx
Penghambatan Metaloenzim
Kira-kira sepertiga dari semua enzim memiliki logam sebagai bagian dari strukturnya, membutuhkan logam yang ditambahkan untuk aktivitas atau selanjutnya akan diaktivasi oleh logam. Dalam enzim dimana sebuah logam telah dibangun menjadi struktur molekul enzim, logamnya tidak bisa dipisahkan tanpa menghancurkan strukturnya. Contoh enzim tersebut adalah metaloflavoprotein, sitokrom dan feredoksin. Di dalam enzim dimana logamnya ditambahkan untuk aktivitasnya, logamnya bereaksi secara reversibel dengan protein untuk membentuk kompleks protein-logam yang merupakan katalis aktif. Dalam banyak contoh, kompleks tersebut menunjukkan sebuah konformasi spesifik, katalitik aktif dari protein, sehingga salah satu fungsi logam adalah untuk menstabilkan konformasi tersebut.
Karena pengelompokannya, metaloenzim sangat besar dan luas, dan akan hampir tidak mungkin untuk menjelaskan bagaimana semuanya dapat dikontrol dan diatur. Karena hal tersebut, penting untuk menyebutkan bagaimana fungsi penting logam di dalam enzim dapat diganggu sehingga dapat dihambat. Logam yang menyerupai proton (H+) karena bersifat elektrofil dan dapat menangkap sebuah pasangan elektron untuk membentuk ikatan kimia. Pada saat proses pengikatan tersebut, logam bisa bertindak sebagai asam umum untuk bereaksi dengan ligan anion dan netral. Ciri logam ini berguna dalam fungsi dan struktur enzimatik, tetapi untuk membentuk enzim tergantung pada pH. Perubahan pH dapat mengganggu aliran elektron yang difasilitasi oleh logam sehingga dapat menghambat keseluruhan efektivitas metaloenzim.
Selain itu, karena kemampuan variabilitas yang tidak dapat dipisahkan dari logam untuk bereaksi dengan lebih sari satu ligan, logam adalah bagian dari sisi aktif dalam banyak metaloenzim. Inhibitor kompetitif dalam keadaan analog-transisi adalah senyawa yang dipercaya menyerupai substrat dalam keadaan transisi. Agar efektif, keadaan analog-transisi harus tidak mudah terpengaruh pada reaksi yang diaktivasi oleh enzim. Inhibisi kompetitif, melalui keadaan analog-transisi, telah ditunjukkan di dalam reaksi Carboxypeptidase A oleh molekul fosfor yang dibuat oleh Paul Bartlett dan dapat dilihat pada gambar di bawah ini.

Akan berfungsi baik dalam penghambatan CPA karena atom fosfor dengan ikatan oksigen dan nitrogen, menyerupai atom karbon tetrahedral dalam dua intermediet, dan keadaan transisi dari 3 tahapan.
Regulasi Metaloenzim Melalui Diet
Seperti yang telah dijelaskan, logam mempunyai peranan penting dalam aktivitas sejumlah besar molekul biologi. Sumber seng pada manusia hampir seluruhnya berasal dari diet dan tanpa penyerapan logam seperti seng dalam dietnya, maka produksi dan aktivitas banyak enzim penting akan terhambat. Di antara enzom yang tidak akan diproduksi oleh tubuh karena ketidakadaan seng dalam tubuh adalah karbonik anhidrase, karboksipeptidase, alkalin fosfatase asam laktat dan alkohol dehidrogenase.
Asupan seng yang direkomendasikan setiap harinya adalah 15mg, dan 20mg serta 25mg selama kehamilan dan menyusui. Rata-rata manusia dewasa menyerap 12-20mg seng per hari. Defisiensi seng akan menyebabkan gangguan pertumbuhan, pembesaran hati dan limpa, serta ketidaknormalan organ kelamin dan munculnya sifat seks sekunder. Selain kekurangan asupan seng, defisiensi seng dapat pula karena ekskresi seng melalui keringat atau karena kehilangan darah jika terjadi infeksi parasit.
Ada bukti yang menunjukkan bahwa seng memainkan fungsi dalam pemanfaatan dan biosintesis protein. Penambahan sejumlah kecil seng ke dalam makanan yang mengandung protein sayur yang kurang optimal menyebabkan peningkatan penggunaan protein dan peningkatan pertumbuhan. Cacat ini bisa diakibatkan oleh kesalahan sintesis protein. Seng menghambat enzim ribonuklease. Sehingga dalam defisiensi seng, perusakan RNA yang melampaui batas dapat terjadi. Hal ini menjelaskan bahwa asupan logam tidak hanya penting untuk produksi enzim penting, tetapi juga untuk penghambatan enzim yang lain.
Sumber:
http://www.cs.stedwards.edu/chem/Chemistry/CHEM43/CHEM43/Metallo/Metallo.HTML#funx
Label:
Biochemistry
Tahapan-Tahapan di dalam Profase I (Pembelahan Meiosis)
Profase I adalah tahapan yang paling kompleks pada meiosis. Selain itu, profase I di pembelahan meiosis jauh lebih lama daripada mitosis. Selama tahap ini, kromosom homolog saling berlekatan dan saling menukarkan DNA. Profase I dibagi menjadi 5 tahap, yaitu Leptoten, Zigoten, Pakiten, Diploten dan Diakinesis.
Leptoten
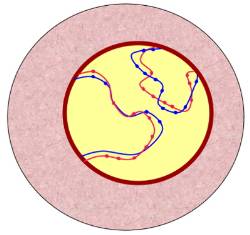
Pada tahap pertama ini, kromosom tampak berada di antara amplop inti (nuclear envelope), yang dapat dilihat pada Gambar 1, tetapi belum terkondensasi seluruhnya. Di dalam Gambar tersebut, dua kromosom dari garis ayah ditunjukkan dengan warna merah, sedangkan dari garis ibu dengan warna biru. Masing-masingnya merupakan untai DNA yang tipis (Lepto adalah Bahasa Yunani yang berarti tipis dan -tene adalah Bahasa Yunani yang berarti pita), bersama dengan manik-manik gulungan kromomer. Kromosom yang memiliki bentuk seperti ini disebut dengan kromatonemata (bentuk tunggal: kromonema, -nema adalah Bahasa Yunani yang berarti untai). Kromosom terlihat tunggal karena kromatid saudara sangat melekat erat satu sama lain sehingga tidak terlihat. Selama fase ini, telomer dari kedua kromosom berbalik arah dan melekat ke tempat perlekatan amplop nuklir. Leptoten dapat pula disebut sebagai Leptonema dan Tahap Karangan Bunga (bouquet stage) karena semua telomer cenderung untuk berlekatan dengan amplop nuklir di satu titik sehingga lingkaran kromosom serupa balon keluar dari titik itu menyerupai mahkota bunga.
 Gambar 1. Leptoten
Zigoten
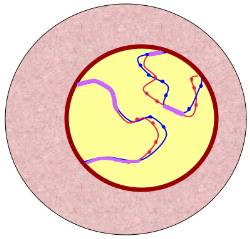
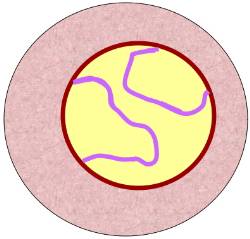
Selama zigoten, kromosom homolog mulai menyatu dengan saling sejajar (Zygo adalah Bahasa Yunani yang berarti penyatuan, berfusi atau terhubung). Sinapsis adalah proses fusi yang terjadi antara kromosom homolog bermula pada berbagai titik di sepanjang kromosom dan memanjang ke luar seperti resleting hingga selesai. Ketika sinapsis selesai, kromosom homolog yang berfusi terlihat seperti kromosom tunggal di bawah mikroskop, tetapi sebenarnya sepasang. Daerah antarmuka dimana dua kromosom homolog bersatu, disebut kompleks sinaptonemal, dapat dilihat di bawah mikroskop.
Pada Gambar 2, Zigoten Awal, daerah dimana kromosom homolog paternal dan maternal telah berfusi ditunjukkan dengan warna ungu. Pada Gambar 3, Zigoten Akhir, kedua pasangan kromosom homolog telah berfusi di seluruh panjang kromosom tersebut (sehingga semuanya terhilat berwarna ungu). Zigoten disebut juga zigonema.
Tetrad:
Sekali pasangan kromosom homolog bersinapsis, kromosom ini disebut tetrad (masing-masing memiliki 4 kromatid; tetra adalah Bahasa Yunani yang berarti empat)atau bivalen. Bivalen adalah istilah yang lebih benar, tetapi istilah tetrad lebih umum digunakan. Bivalen merupakan istilah yang lebih benar karena ada istilah ekuivalen untuk keadaan yang lain. Misalnya, kromosom homolog yang tidak berfusi disebut sebuah univalen. Contoh lain, jika ada 3 kromosom homolog yang berfusi, maka disebut trivalen, dan sebagainya.
 Gambar 2. Zigoten Awal
 Gambar 3. Zigoten Akhir
Pakiten
Selama pakiten, dua kromatid bersaudara dari setiap kromosom saling berpisah. Hal ini membuat kromosom terlihat lebih tebal (phacy- adalah Bahasa Yunani yang berarti tebal). Pada titik ini, kromosom homolog masih berpasangan. Pakiten disebut juga pakinema.
Pindah Silang:
Kromatid bukan saudara tetap saling berhubungan pada fase pakiten dan terjadi pemutusan DNA yang diikuti oleh pertukaran segmen DNA diantara keduanya. Proses ini disebut dengan pindah silang (crossing over). Pindah silang menghasilkan 'kromatid pindah-silang,' masing-masing mengandung segmen DNA berbeda. Sebagian segmen berasal dari ayah dan sebagiannya lagi dari ibu.
Diploten
Pada awal fase ini, setiap kromatid pada setiap kromosom masih berfusi pada kromatid kromosom homolognya (pada titik ini, kromatid bersaudara telah berpisah). Seiring dengan berkembangnya fase diploten, kromatid bukan saudara yang telah berfusi, mulai berpisah satu sama lain. Tetapi mereka tidak dapat berpisah sempurna, karena masih saling terhubung oleh dua untai DNA di titik dimana pertukaran segmen DNA terjadi. Pada setiap titik pindah silang semacam itu, dua untai DNA membentuk struktur berbentuk x yang disebut kiasma (jamak: kiasmata). Kiasmata kemudian mulai bergerak ke ujung kromatid. Proses peluncuran ke ujung kromatid ini disebut terminalisasi.
Dalam oosit, tahap diploten yang spesial dan lama terjadi, disebut diktioten. Oosit primer menjalani 3 tahap pertama dari tahap Profase I (leptoten, zigoten, pakiten) selama akhir masa hidup janin. Proses ini kemudian ditunda selama diploten hingga pubertas atau setelah itu. Sehingga diktioten (dan profase I) dapat terjadi berbulan-bulan atau bertahun-tahun, tergantung pada tipe organismenya. Diploten juga dikenal dengan istilah diplonema.
Diakinesis
Diakinesis adalah tahap akhir dari profase I. Pada tahap ini, nukleolus menghilang, terminalisasi mencapai tahap sempurna, dan kromosom menggulung dengan erat, sehingga menjadi lebih pendek dan lebih tebal. Amplop nuklir mulai menghilang, dan sentrosom menuju ke kutub.
Sumber:
http://www.macroevolution.net/prophase-details.html
Leptoten
Pada tahap pertama ini, kromosom tampak berada di antara amplop inti (nuclear envelope), yang dapat dilihat pada Gambar 1, tetapi belum terkondensasi seluruhnya. Di dalam Gambar tersebut, dua kromosom dari garis ayah ditunjukkan dengan warna merah, sedangkan dari garis ibu dengan warna biru. Masing-masingnya merupakan untai DNA yang tipis (Lepto adalah Bahasa Yunani yang berarti tipis dan -tene adalah Bahasa Yunani yang berarti pita), bersama dengan manik-manik gulungan kromomer. Kromosom yang memiliki bentuk seperti ini disebut dengan kromatonemata (bentuk tunggal: kromonema, -nema adalah Bahasa Yunani yang berarti untai). Kromosom terlihat tunggal karena kromatid saudara sangat melekat erat satu sama lain sehingga tidak terlihat. Selama fase ini, telomer dari kedua kromosom berbalik arah dan melekat ke tempat perlekatan amplop nuklir. Leptoten dapat pula disebut sebagai Leptonema dan Tahap Karangan Bunga (bouquet stage) karena semua telomer cenderung untuk berlekatan dengan amplop nuklir di satu titik sehingga lingkaran kromosom serupa balon keluar dari titik itu menyerupai mahkota bunga.
Zigoten
Selama zigoten, kromosom homolog mulai menyatu dengan saling sejajar (Zygo adalah Bahasa Yunani yang berarti penyatuan, berfusi atau terhubung). Sinapsis adalah proses fusi yang terjadi antara kromosom homolog bermula pada berbagai titik di sepanjang kromosom dan memanjang ke luar seperti resleting hingga selesai. Ketika sinapsis selesai, kromosom homolog yang berfusi terlihat seperti kromosom tunggal di bawah mikroskop, tetapi sebenarnya sepasang. Daerah antarmuka dimana dua kromosom homolog bersatu, disebut kompleks sinaptonemal, dapat dilihat di bawah mikroskop.
Pada Gambar 2, Zigoten Awal, daerah dimana kromosom homolog paternal dan maternal telah berfusi ditunjukkan dengan warna ungu. Pada Gambar 3, Zigoten Akhir, kedua pasangan kromosom homolog telah berfusi di seluruh panjang kromosom tersebut (sehingga semuanya terhilat berwarna ungu). Zigoten disebut juga zigonema.
Tetrad:
Sekali pasangan kromosom homolog bersinapsis, kromosom ini disebut tetrad (masing-masing memiliki 4 kromatid; tetra adalah Bahasa Yunani yang berarti empat)atau bivalen. Bivalen adalah istilah yang lebih benar, tetapi istilah tetrad lebih umum digunakan. Bivalen merupakan istilah yang lebih benar karena ada istilah ekuivalen untuk keadaan yang lain. Misalnya, kromosom homolog yang tidak berfusi disebut sebuah univalen. Contoh lain, jika ada 3 kromosom homolog yang berfusi, maka disebut trivalen, dan sebagainya.
Pakiten
Selama pakiten, dua kromatid bersaudara dari setiap kromosom saling berpisah. Hal ini membuat kromosom terlihat lebih tebal (phacy- adalah Bahasa Yunani yang berarti tebal). Pada titik ini, kromosom homolog masih berpasangan. Pakiten disebut juga pakinema.
Pindah Silang:
Kromatid bukan saudara tetap saling berhubungan pada fase pakiten dan terjadi pemutusan DNA yang diikuti oleh pertukaran segmen DNA diantara keduanya. Proses ini disebut dengan pindah silang (crossing over). Pindah silang menghasilkan 'kromatid pindah-silang,' masing-masing mengandung segmen DNA berbeda. Sebagian segmen berasal dari ayah dan sebagiannya lagi dari ibu.
Diploten
Pada awal fase ini, setiap kromatid pada setiap kromosom masih berfusi pada kromatid kromosom homolognya (pada titik ini, kromatid bersaudara telah berpisah). Seiring dengan berkembangnya fase diploten, kromatid bukan saudara yang telah berfusi, mulai berpisah satu sama lain. Tetapi mereka tidak dapat berpisah sempurna, karena masih saling terhubung oleh dua untai DNA di titik dimana pertukaran segmen DNA terjadi. Pada setiap titik pindah silang semacam itu, dua untai DNA membentuk struktur berbentuk x yang disebut kiasma (jamak: kiasmata). Kiasmata kemudian mulai bergerak ke ujung kromatid. Proses peluncuran ke ujung kromatid ini disebut terminalisasi.
Dalam oosit, tahap diploten yang spesial dan lama terjadi, disebut diktioten. Oosit primer menjalani 3 tahap pertama dari tahap Profase I (leptoten, zigoten, pakiten) selama akhir masa hidup janin. Proses ini kemudian ditunda selama diploten hingga pubertas atau setelah itu. Sehingga diktioten (dan profase I) dapat terjadi berbulan-bulan atau bertahun-tahun, tergantung pada tipe organismenya. Diploten juga dikenal dengan istilah diplonema.
Diakinesis
Diakinesis adalah tahap akhir dari profase I. Pada tahap ini, nukleolus menghilang, terminalisasi mencapai tahap sempurna, dan kromosom menggulung dengan erat, sehingga menjadi lebih pendek dan lebih tebal. Amplop nuklir mulai menghilang, dan sentrosom menuju ke kutub.
Sumber:
http://www.macroevolution.net/prophase-details.html
Label:
biology,
cell division,
meiosis,
profase
Rabu, 28 Oktober 2015
The Abandoned Fruits in Indonesia
In my childhood, as a villager, I lived my life mostly playing within the trees, shrubs and vines. My home is next to the paddy fields. That is why some wild vines and shrubs are very familiar to me, such as wild passiflora and physalis. Beside of that, my parents once had a huge yard. Various kind of mango trees were planted there. There were also jackfruit, jambu, papaya, guava tree, etc. One time, my parents planted other kind of fruiting tree such as rambutan or avocado. But because of some problems in the soil, these kind of trees never bear a fruit. So they were just cut down.
What I want to say is I feel like I know almost all of fruiting trees (at least my knowledge is better than others who live in the city). But, hello, I was wrong. I visitied Banjarbaru about 2 weeks ago and found two kind of fruits that really new for me. They called them buah kecapi (wild mangosteen) and buah mentega (velvet apple). I just felt very curious why I did not even know about these fruits!
Then I remember that one of my office colleagues told me that in his hometown, many teenagers (todays generation) did not have knowledge about local fruits anymore because people just cut them down for the logs. These kind of fruiting trees usually have unfavorable characteristics. Thus, not many people want to eat these fruits anymore. For example, in the case of buah kecapi, it tastes sour and sweet (a little bit), also the flesh stick to the seed, so we almost can not enjoy the flesh. That is why people do not sell and distribute it anymore around the country. As the result, todays generation never know that this fruit is exist.
As I remember my childhood memories and also from the information from my friends on facebook (I made a survey about unpopular fruits on facebook), there are several fruiting trees that also already abandoned because of their unfavorable traits.
1. Juwet (Synzygium cumini)
2. Cerme (Phyllantus acidus)
3. Kepundung (Baccaurea sp.)
4. Jambu mawar (Syzygium jambos)
5. Kepel (Stelechocarpus burahol)
6. many more (still searching… :D)
So, why is it matter to me? Well, as an Indonesian, I think it is very important for me to respect indigenous fruiting trees, by study them and preserve their existence in Indonesia. Our responsibility today is how to make them popular among those imported fruits. Moreover, it is also our responsibility to make the local farmers prefer to plant indigenous fruits. The question is how to change their unfavorable characteristics? It seems very difficult, but at least, by knowing them, later we have willingness to solve these problems.
What I want to say is I feel like I know almost all of fruiting trees (at least my knowledge is better than others who live in the city). But, hello, I was wrong. I visitied Banjarbaru about 2 weeks ago and found two kind of fruits that really new for me. They called them buah kecapi (wild mangosteen) and buah mentega (velvet apple). I just felt very curious why I did not even know about these fruits!
Then I remember that one of my office colleagues told me that in his hometown, many teenagers (todays generation) did not have knowledge about local fruits anymore because people just cut them down for the logs. These kind of fruiting trees usually have unfavorable characteristics. Thus, not many people want to eat these fruits anymore. For example, in the case of buah kecapi, it tastes sour and sweet (a little bit), also the flesh stick to the seed, so we almost can not enjoy the flesh. That is why people do not sell and distribute it anymore around the country. As the result, todays generation never know that this fruit is exist.
As I remember my childhood memories and also from the information from my friends on facebook (I made a survey about unpopular fruits on facebook), there are several fruiting trees that also already abandoned because of their unfavorable traits.
1. Juwet (Synzygium cumini)
2. Cerme (Phyllantus acidus)
3. Kepundung (Baccaurea sp.)
4. Jambu mawar (Syzygium jambos)
5. Kepel (Stelechocarpus burahol)
6. many more (still searching… :D)
So, why is it matter to me? Well, as an Indonesian, I think it is very important for me to respect indigenous fruiting trees, by study them and preserve their existence in Indonesia. Our responsibility today is how to make them popular among those imported fruits. Moreover, it is also our responsibility to make the local farmers prefer to plant indigenous fruits. The question is how to change their unfavorable characteristics? It seems very difficult, but at least, by knowing them, later we have willingness to solve these problems.
Label:
agriculture,
biodiversity,
biology,
fruiting tree,
germplasms,
indonesia
Senin, 18 Mei 2015
Asal-Usul, Perkembangan dan Propagasi Chimera
Pendahuluan
Sebuah tanaman disebut chimera ketika sel-sel yang memiliki lebih dari sebuah genotip ditemukan tumbuh berdekatan di dalam jaringan tanaman tersebut. ‘Variegated plants’ (tanaman yang jaringannya berwarna keputihan di antara jaringan tanaman yang hijau) mungkin adalah tipe paling umum dari chimera, dan tentu saja contoh yang paling cocok untuk digunakan dalam mengenalkan konsep dasar. Sel-sel di dalam sebuah daun ‘variegated plant’, semuanya berasal dari meristem apikal tunas, tetapi beberapa sel ditandai oleh ketidakmampuan mensintesis klorofil. Sel-sel ini kemudian memunculkan warna putih, bukan hijau, meskipun sel-sel tersebut adalah bagian dari sistem jaringan yang sama. Banyak seleksi penting dari tanaman berdaun, tanaman florikultur dan tanaman lanskap adalah chimera. ‘Cornus alba’ Argenteo Marginata, ‘Vinca minor' Variegata, ‘Ajuga reptans' Burgundy Glow, dan banyak seleksi dari ‘Hosta’, ‘Diffenbachia’, ‘Peperomia’, ‘Chlorophytum’, dan juga ‘Saintpaulia, tetapi sedikit dari chimera yang memiliki ‘variegated leaf’.
Maksud artikel ini adalah untuk memeriksa asal mula dan perkembangan tanaman chimera, untuk memperkenalkan tindakan pencegahan yang harus diikuti untuk propagasi chimera, dan untuk mendiskusikan chimera hortikultural yang lebih penting daripada tipe ‘variegated plant’.
Konsep Organisasi Apikal
Diskusi mengenai chimera tidak akan pernah lengkap tanpa ulasan mengenai organisasi ujung tunas. Pola pembelahan sel, frekuensi pembelahan sel dan organisasi lapisan sel di daerah pucuk saling berinteraksi dalam menentukan tipe chimera dan stabilitas pola yang dihasilkan.
Meristem apikal sebuah tunas adalah tempat dibentuknya sebagian besar sel yang menghasilkan tubuh tanaman. Pembelahan sel terjadi pada kecepatan yang sangat tinggi dalam sebuah pucuk yang aktif tumbuh dan sel-sel ini pada gilirannya memanjang atau melebar menghasilkan pertumbuhan pemanjangan tunas. Tanaman berkayu dan tanaman herba tertentu mengandung meristem sekunder yang menyebabkan peningkatan pertumbuhan, tetapi pertumbuhan sekunder ini tidak akan dibahas di sini. Gambar 1 adalah sketsa dari potongan membujur meristem apikal dari tunas tanaman dikotil. Primordial daun keluar dari sisi kubah apikal dan tunas lateral berkembang di dalam ketiak dari daun-daun muda ini.
 Gambar I. Meristem Apikal Tanaman Dikotil
Ujung tunas diorganisasi menjadi wilayah berlapis (tunika) dan sebuah wilayah dimana lapisannya tidak jelas (korpus). Pola pengendalian pembelahan sel di dalam tunika menghasilkan pemeliharaan lapisan-lapisan yang berbeda, dengan sejumlah lapisan yang bervariasi di antara spesies yang berbeda. Penting untuk dicatat bahwa lapisan-lapisan tersebut mempertahankan organisasinya menjadi wilayah dimana daun dan tunas lateral berkembang.
Derivat lapisan terluar (L.I) merupakan cikal bakal epidermis (Gambar 1). Lapisan epidermal terus melapisi semua jaringan daun, batang, mahkota bunga dan lain-lain. Derivat lapisan II (L.II) menjadi beberapa lapisan di antara batang dan proporsi yang besar dari sel di dalam helai daun. Derivat lapisan III (L.III) akan berubah menjadi sebagian besar jaringan sebelah dalam dari batang dan sejumlah sel-sel di sekeliling jaringan pengangkut di antara daun. Pentingnya lapisan-lapisan sel dan perkembangannya akan didiskusikan dalam topik berikut.
Asal Usul Chimera
Chimera muncul ketika sel mengalami mutasi. Mutasi ini bisa spontan atau diinduksi oleh iradiasi atau perlakuan dengan mutagen dari bahan kimia. Jika sel yang bermutasi terletak di dekat puncak kubah pucuk, maka semua sel yang lain yang dihasilkan dari pembelahan dari kubah pucuk tersebut akan menjadi termutasi. Hasilnya adalah sel-sel dengan genotip yang berbeda yang tumbuh berdampingan di suatu jaringan tanaman, inilah yang menjadi definisi chimera.
Jika lokasi sel pada saat mutasi adalah di daerah di mana pembelahan sel sangat sedikit berlangsung, kemungkinan untuk mendeteksi mutasi ini dengan mengamati seluruh tanaman secara visual akan sulit. Terlebih lagi, jika mutasinya menghasilkan sebuah genotip yang tidak terlalu berbeda secara morfologi dari tanaman tersebut, kemungkinan mengidentifikasi tanaman tersebut sebagai chimera juga rendah. Sebuah mutasi yang menghasilkan sel-sel tak berwarna daripada sel-sel hijau (‘variegation’) sangat mudah dideteksi, sedangkan mutasi yang menghasilkan sel-sel dengan akumulasi gula yang lebih besar daripada sel-sel yang lain, akan sulit diamati.
Chimera Periklinal, Meriklinal, dan Sektorial
Tanaman chimera dapat dikategorikan berdasarkan pada lokasi dan proporsi relatif sel-sel termutasi terhadap sel-sel yang tidak termutasi di meristem apikal. Chimera periklinal adalah kategori yang paling penting karena chimera ini relatif stabil dan dapat diperbanyak secara vegetatif. Sebuah mutasi menghasilkan chimera periklinal jika sel-sel yang terpengaruh letaknya di dekat kubah apikal sehingga sel-sel yang diproduksi oleh pembelahan berikutnya membentuk seluruh lapisan dari tipe termutasi. Hasil meristemnya mengandung satu lapis yang secara genetik berbeda dari meristem asalnya. Jika, misalnya, mutasi terjadi di L.I., maka lapisan epidermis pucuk yang diproduksi setelah mutasi adalah tipe genetik yang baru.
 Gambar 2. Perkembangan Chimera
Sebuah contoh yang representatif dari chimera periklinal adalah ‘blackberry’ tak berduri. Lapisan epidermis dari tipe ini tidak membentuk duri (sel-sel epidermis termodifikasi biasanya disebut ‘duri’). Epidermis tak berduri menutupi batang yang sel-selnya mengandung informasi untuk genotip berduri. Hal ini dapat ditunjukkan dengan mengambil potongan akar. Pucuk adventif yang berdiferensiasi pada potongan akar bukan merupakan chimera sehingga kembali pada genotip berduri.
Mericlinal chimeras Chimera meriklinal diproduksi ketika derivat sel-sel termutasi tidak menutupi semua kubah apikal. Sebuah lapisan sel-sel yang termutasi dapat dipelihara pada hanya satu bagian meristem yang akan menghasilkan pucuk chimera atau daun yang akan berkembang di area itu sedangkan area yang lain normal. Banyak chimera meriklinal mengikutsertakan jumlah sel-sel yang terbatas sehingga hanya sedikit area pada satu daun yang akan terkena dampaknya. Seperti pada kasus chimera periklinal, kimera meriklinal secara umum terbatas pada satu lapisan sel. Chimera sektorial terbentuk dari mutasi yang berdampak pada sebagian dari meristem apikal, genotip yang berubah melebar melalui semua lapisan sel. Tipe chimera ini tidak stabil dan dapat menghasilkan tunas dan daun yang bukan chimera. Kedua tipe normal dan tipe termutasi dapat dihasilkan, tergantung pada titik pada ujung dimana tunas berdiferensiasi.
Pengenalan Pola Chimera
Pengamatan yang cermat pada pola pewarnaan daun dikotil pada ‘variegated plant’ memungkinkan seseorang untuk menyimpulkan sifat lapisan chimera dalam ujung tunas. Karakterisasi lengkap alami dari ketiga lapisan tidak dapat dibuat secara makroskopis karena sebagian besar sel lapisan epidermis daun dikotil tidak memproduksi kloroplas bahkan jika informasi genetik untuk perkembangan kloroplas tersedia. Meskipun demikian sel-sel penjaga pada stomata mengandung kloroplas yang secara genetik lapisan pertamanya hijau, tetapi hal ini harus diamati di bawah mikroskop.
Istilah yang digunakan untuk menggambarkan sifat lapisan sel adalah menggunakan huruf besar dalam urutan untuk mendenotasikan komposisi genetik dari sel-sel yang terkandung di dalamnya. Sebagai contohnya, penandaan yang benar untuk chimera periklinal dengan sebuah lapisan L.I hijau, lapisan L.II putih dan lapisan L.III hijau adalah G-W-G.
Pada daun dikotil, tepi daun berasal dari L.II. Luasnya tepi daun yang diakibatkan oleh L.II bervariasi di antara spesies, dan pada beberapa kasus, luasnya tepi daun bervariasi di antara daun pada batang yang sama. Daun yang digambarkan pada Gambar 2A diproduksi dari meristem yang bernotasi G-G-G (bukan chimera, bukan ‘variegated plant’), sedangkan daun pada Gambar 2B diproduksi dari G-W-G ‘variegated plant’.
Pada tanaman monokotil, L.I berkontribusi pada perkembangan tepi daun dan sebagian besar daerah tengah yang berkembang dari lapisan L.II. Tidak seperti daun tanaman dikotil, L.III hanya berkontribusi sedikit pada sel dari helaian daun. gambar 3A-E merepresentasikan pola ‘leaf variegation’ dari tanaman Chlorophytum comosum. Gambar 3A (atas) adalah dari sebuah tanaman G-G-G (bukan chimera, bukan ‘variegated plant’), Gambar 3B (kedua dari atas) adalah dari tanaman W-G-G, dan Gambar 3C (tengah) adalah dari tanaman G-W-W. Keragaman dari daun ke daun dalam kontribusi L.I dan L.II ke proporsi sel-sel di dalam daun dari sebuah tanaman ditunjukkan pada Gambar 3D dan 3E (dua daun di bawah). Kedua daun diambil dari tanaman yang sama, tetapi daerah tepi yang hijau yang diberikan oleh L.I ke daun dalam Gambar 3D jauh lebih besar. Pengamatan yang sama mengindikasikan bahwa perkembangan pola daun dan kontribusi lapisan sel apikal yang berbeda ke perkembangan daun tidak dapat dikontrol dengan baik.
Perwujudan Chimera Selain Variegation
Ketika ‘variegation’ merepresentasikan wujud chimera yang sangat terlihat, harus lebih jelas dari pada pembahasan sebelumnya bahwa dalam teori sebuah tanaman dapat menjadi chimera untuk semua sifat. Beberapa chimera yang jarang terjadi meliputi hilangnya pelengkap epidermal (blackberry tanpa duri, pohon persik tanpa bulu), perubahan warna daun pelindung pada ‘Euphorbia pulcherrima’, dan beragam pola warna mahkota pada anyelir dan krisan.
Chimera untuk level ploidi telah dipelajari secara ekstensif pada tanaman buah. Tetraploidi (penggandaan jumlah kromosom normal) menghasilkan buah yang lebih besar dari pada ukuran normalnya ketika sifat ini diletakkan di lapisan L.II dan L.III. Fenomena ini telah dipelajari di apel dan anggur.
Perbanyakan Tanaman Chimera
Chimera meriklinal dan sektorial tidak stabil secara alami dan perbanyakan tanaman untuk menghasilkan anakan yang sama secara morfologis dari tipe ini sangat rendah. Chimera periklinal sangat stabil dan dalam beberapa kasus (seperti pada ‘Chlorophytum variegated’) tanaman chimera paling jarang tersedia untuk diperjualbelikan.
Teknik yang paling sering digunakan untuk perbanyakan tanaman yaitu dalam bentuk chimera periklinal ‘true-to-type’. Ketepatan dalam perbanyakan tumbuh dari fakta bahwa susunan lapisan sel dalam meristem apikal tunas samping identik dengan susunan meristem dari asal tempat terbentuknya. Sehingga lapisan I, II dan III mengkontribusikan sel-sel ke meristem samping yang berdiferensiasi. Stek yang berakar, tunas, sambung pucuk, pembelahan dan perundukan semuanya adalah teknik perbanyakan dengan ketepatan yang tinggi. Permulaan penting dari aturan tersebut ditemukan dalam kasus dimana propagul berdiferensiasi dari tunas adventif. Sebuah kasus yang dibahas sebelumnya yang menggambarkan masalah ini adalah blackberry tanpa duri. Akar adventif yang terbentuk pada stek batang blackberry atau lapisan ujung berasal dari jaringan subepidermis dari batang (L.II dan L.III). Jika potongan akar kemudian diambil dari tanaman ini, tunas adventif tidak mengandung lapisan dengan genotip ‘tak berduri’ (L.I) dan propagulnya adalah tipe yang ‘berduri’.
 Tunas Adventif
Seperti pada blackberry berduri, ‘Saintpaulia sp’. juga tidak bisa diperbanyak dengan cara true-to-type melalui stek daun. Tunas yang berasal dari stek daun biasanya berwarna tunggal atau dua warna belang yang tidak beraturan tanpa sifat pola pembungaan. Perbanyakan dengan ketepatan yang tinggi dari ‘Saintpaulia' sp. saat ini diperoleh dengan memisahkan penghisap yang berasal dari tunas samping. Hal ini menggambarkan sifat pola pembungaan lapisan sel dalam meristem apikal.
 Gambar 3. 'Variegation' pada 'Saintpaulia' sp.
Pemisahan Chimera dalam Kultur Jaringan
Kultur jaringan tanaman memungkinkan perbanyakan tanaman dari sejumlah sel yang sangat kecil di antara sistem jaringan atau di dalam kasus yang ekstrim, dari sel isolat tunggal (sel protoplas). Ketika diaplikasikan pada tanaman chimera, teknologi kultur jaringan menawarkan sebuah alat yang belum pernah ada sebelumnya untuk ‘mengiris’ atau memisahkan chimera untuk penelitian morfologi dari genotip komponennya. Dengan cara seperti itu, fakta bahwa chimera bisa dipisahkan dengan pembentukan tunas adventif dengan kekacauan yang bersamaan pada susunan sel-sel lapisan apikal menciptakan masalah yang serius jika menggunakan teknik ini untuk perbanyakan klonal yang cepat.
Pengalaman di laboratorium kami telah memperlihatkan bahwa ‘Ajuga reptans’ berproliferasi in vitro dari tunas aksiler dan tunas adventif. Planlet tersebut yang tumbuh dari tunas aksiler adalah fenotip yang normal. Tetapi planlet yang bervariasi juga dihasilkan. Sehingga terdapat dua tipe planlet. Tipe yang sering muncul adalah tipe daun yang berwarna hijau gelap. Tipe yang lain adalah yang sama sekali tidak mengandung klorofil, tampak merah muda di dalam kultur, tetapi gagal mengakar dan tumbuh karena ketidakmampuannya untuk berfotosintesis. Sebagian besar proliferasi terjadi dari perkembangan tunas aksiler karena hampir 70% planlet yang diproduksi adalah ‘true-to-type’.
 Gambar 4. 'Ajuga reptans'
Ringkasan
Chimera periklinal yang stabiul menghasilkan penampakan tanaman yang unik. Kemampuan untuk memperbanyak tanaman ini dengan cara true-to-type tergantung pada penggunaan teknik propagasi yang memanfaatkan tunas lateral. Organisasi lapisan meristem apikal yang disifati untuk chimera periklinal dikelola dalam meristem lateral, tetapi biasanya hilang selama diferensiasi tunas adventif. Metode kultur jaringan tanaman menyediakan pemisahan genotip chimera dalam beberapa spesies, memfasilitasi penelitian pemisahan komponen genotip. Keuntungan kultur jaringan ini mungkin adalah kecenderungan dalam sistem yang berproliferasi in vitro melalui pembentukan tunas adventif, karena perbanyakan tanaman yang bervariasi mungkin saja terjadi.
Sumber:
http://aggie-horticulture.tamu.edu/tisscult/Chimeras/chimeralec/chimeras.html
Sebuah tanaman disebut chimera ketika sel-sel yang memiliki lebih dari sebuah genotip ditemukan tumbuh berdekatan di dalam jaringan tanaman tersebut. ‘Variegated plants’ (tanaman yang jaringannya berwarna keputihan di antara jaringan tanaman yang hijau) mungkin adalah tipe paling umum dari chimera, dan tentu saja contoh yang paling cocok untuk digunakan dalam mengenalkan konsep dasar. Sel-sel di dalam sebuah daun ‘variegated plant’, semuanya berasal dari meristem apikal tunas, tetapi beberapa sel ditandai oleh ketidakmampuan mensintesis klorofil. Sel-sel ini kemudian memunculkan warna putih, bukan hijau, meskipun sel-sel tersebut adalah bagian dari sistem jaringan yang sama. Banyak seleksi penting dari tanaman berdaun, tanaman florikultur dan tanaman lanskap adalah chimera. ‘Cornus alba’ Argenteo Marginata, ‘Vinca minor' Variegata, ‘Ajuga reptans' Burgundy Glow, dan banyak seleksi dari ‘Hosta’, ‘Diffenbachia’, ‘Peperomia’, ‘Chlorophytum’, dan juga ‘Saintpaulia, tetapi sedikit dari chimera yang memiliki ‘variegated leaf’.
Maksud artikel ini adalah untuk memeriksa asal mula dan perkembangan tanaman chimera, untuk memperkenalkan tindakan pencegahan yang harus diikuti untuk propagasi chimera, dan untuk mendiskusikan chimera hortikultural yang lebih penting daripada tipe ‘variegated plant’.
Konsep Organisasi Apikal
Diskusi mengenai chimera tidak akan pernah lengkap tanpa ulasan mengenai organisasi ujung tunas. Pola pembelahan sel, frekuensi pembelahan sel dan organisasi lapisan sel di daerah pucuk saling berinteraksi dalam menentukan tipe chimera dan stabilitas pola yang dihasilkan.
Meristem apikal sebuah tunas adalah tempat dibentuknya sebagian besar sel yang menghasilkan tubuh tanaman. Pembelahan sel terjadi pada kecepatan yang sangat tinggi dalam sebuah pucuk yang aktif tumbuh dan sel-sel ini pada gilirannya memanjang atau melebar menghasilkan pertumbuhan pemanjangan tunas. Tanaman berkayu dan tanaman herba tertentu mengandung meristem sekunder yang menyebabkan peningkatan pertumbuhan, tetapi pertumbuhan sekunder ini tidak akan dibahas di sini. Gambar 1 adalah sketsa dari potongan membujur meristem apikal dari tunas tanaman dikotil. Primordial daun keluar dari sisi kubah apikal dan tunas lateral berkembang di dalam ketiak dari daun-daun muda ini.

Ujung tunas diorganisasi menjadi wilayah berlapis (tunika) dan sebuah wilayah dimana lapisannya tidak jelas (korpus). Pola pengendalian pembelahan sel di dalam tunika menghasilkan pemeliharaan lapisan-lapisan yang berbeda, dengan sejumlah lapisan yang bervariasi di antara spesies yang berbeda. Penting untuk dicatat bahwa lapisan-lapisan tersebut mempertahankan organisasinya menjadi wilayah dimana daun dan tunas lateral berkembang.
Derivat lapisan terluar (L.I) merupakan cikal bakal epidermis (Gambar 1). Lapisan epidermal terus melapisi semua jaringan daun, batang, mahkota bunga dan lain-lain. Derivat lapisan II (L.II) menjadi beberapa lapisan di antara batang dan proporsi yang besar dari sel di dalam helai daun. Derivat lapisan III (L.III) akan berubah menjadi sebagian besar jaringan sebelah dalam dari batang dan sejumlah sel-sel di sekeliling jaringan pengangkut di antara daun. Pentingnya lapisan-lapisan sel dan perkembangannya akan didiskusikan dalam topik berikut.
Asal Usul Chimera
Chimera muncul ketika sel mengalami mutasi. Mutasi ini bisa spontan atau diinduksi oleh iradiasi atau perlakuan dengan mutagen dari bahan kimia. Jika sel yang bermutasi terletak di dekat puncak kubah pucuk, maka semua sel yang lain yang dihasilkan dari pembelahan dari kubah pucuk tersebut akan menjadi termutasi. Hasilnya adalah sel-sel dengan genotip yang berbeda yang tumbuh berdampingan di suatu jaringan tanaman, inilah yang menjadi definisi chimera.
Jika lokasi sel pada saat mutasi adalah di daerah di mana pembelahan sel sangat sedikit berlangsung, kemungkinan untuk mendeteksi mutasi ini dengan mengamati seluruh tanaman secara visual akan sulit. Terlebih lagi, jika mutasinya menghasilkan sebuah genotip yang tidak terlalu berbeda secara morfologi dari tanaman tersebut, kemungkinan mengidentifikasi tanaman tersebut sebagai chimera juga rendah. Sebuah mutasi yang menghasilkan sel-sel tak berwarna daripada sel-sel hijau (‘variegation’) sangat mudah dideteksi, sedangkan mutasi yang menghasilkan sel-sel dengan akumulasi gula yang lebih besar daripada sel-sel yang lain, akan sulit diamati.
Chimera Periklinal, Meriklinal, dan Sektorial
Tanaman chimera dapat dikategorikan berdasarkan pada lokasi dan proporsi relatif sel-sel termutasi terhadap sel-sel yang tidak termutasi di meristem apikal. Chimera periklinal adalah kategori yang paling penting karena chimera ini relatif stabil dan dapat diperbanyak secara vegetatif. Sebuah mutasi menghasilkan chimera periklinal jika sel-sel yang terpengaruh letaknya di dekat kubah apikal sehingga sel-sel yang diproduksi oleh pembelahan berikutnya membentuk seluruh lapisan dari tipe termutasi. Hasil meristemnya mengandung satu lapis yang secara genetik berbeda dari meristem asalnya. Jika, misalnya, mutasi terjadi di L.I., maka lapisan epidermis pucuk yang diproduksi setelah mutasi adalah tipe genetik yang baru.

Sebuah contoh yang representatif dari chimera periklinal adalah ‘blackberry’ tak berduri. Lapisan epidermis dari tipe ini tidak membentuk duri (sel-sel epidermis termodifikasi biasanya disebut ‘duri’). Epidermis tak berduri menutupi batang yang sel-selnya mengandung informasi untuk genotip berduri. Hal ini dapat ditunjukkan dengan mengambil potongan akar. Pucuk adventif yang berdiferensiasi pada potongan akar bukan merupakan chimera sehingga kembali pada genotip berduri.
Mericlinal chimeras Chimera meriklinal diproduksi ketika derivat sel-sel termutasi tidak menutupi semua kubah apikal. Sebuah lapisan sel-sel yang termutasi dapat dipelihara pada hanya satu bagian meristem yang akan menghasilkan pucuk chimera atau daun yang akan berkembang di area itu sedangkan area yang lain normal. Banyak chimera meriklinal mengikutsertakan jumlah sel-sel yang terbatas sehingga hanya sedikit area pada satu daun yang akan terkena dampaknya. Seperti pada kasus chimera periklinal, kimera meriklinal secara umum terbatas pada satu lapisan sel. Chimera sektorial terbentuk dari mutasi yang berdampak pada sebagian dari meristem apikal, genotip yang berubah melebar melalui semua lapisan sel. Tipe chimera ini tidak stabil dan dapat menghasilkan tunas dan daun yang bukan chimera. Kedua tipe normal dan tipe termutasi dapat dihasilkan, tergantung pada titik pada ujung dimana tunas berdiferensiasi.
Pengenalan Pola Chimera
Pengamatan yang cermat pada pola pewarnaan daun dikotil pada ‘variegated plant’ memungkinkan seseorang untuk menyimpulkan sifat lapisan chimera dalam ujung tunas. Karakterisasi lengkap alami dari ketiga lapisan tidak dapat dibuat secara makroskopis karena sebagian besar sel lapisan epidermis daun dikotil tidak memproduksi kloroplas bahkan jika informasi genetik untuk perkembangan kloroplas tersedia. Meskipun demikian sel-sel penjaga pada stomata mengandung kloroplas yang secara genetik lapisan pertamanya hijau, tetapi hal ini harus diamati di bawah mikroskop.
Istilah yang digunakan untuk menggambarkan sifat lapisan sel adalah menggunakan huruf besar dalam urutan untuk mendenotasikan komposisi genetik dari sel-sel yang terkandung di dalamnya. Sebagai contohnya, penandaan yang benar untuk chimera periklinal dengan sebuah lapisan L.I hijau, lapisan L.II putih dan lapisan L.III hijau adalah G-W-G.
Pada daun dikotil, tepi daun berasal dari L.II. Luasnya tepi daun yang diakibatkan oleh L.II bervariasi di antara spesies, dan pada beberapa kasus, luasnya tepi daun bervariasi di antara daun pada batang yang sama. Daun yang digambarkan pada Gambar 2A diproduksi dari meristem yang bernotasi G-G-G (bukan chimera, bukan ‘variegated plant’), sedangkan daun pada Gambar 2B diproduksi dari G-W-G ‘variegated plant’.
Pada tanaman monokotil, L.I berkontribusi pada perkembangan tepi daun dan sebagian besar daerah tengah yang berkembang dari lapisan L.II. Tidak seperti daun tanaman dikotil, L.III hanya berkontribusi sedikit pada sel dari helaian daun. gambar 3A-E merepresentasikan pola ‘leaf variegation’ dari tanaman Chlorophytum comosum. Gambar 3A (atas) adalah dari sebuah tanaman G-G-G (bukan chimera, bukan ‘variegated plant’), Gambar 3B (kedua dari atas) adalah dari tanaman W-G-G, dan Gambar 3C (tengah) adalah dari tanaman G-W-W. Keragaman dari daun ke daun dalam kontribusi L.I dan L.II ke proporsi sel-sel di dalam daun dari sebuah tanaman ditunjukkan pada Gambar 3D dan 3E (dua daun di bawah). Kedua daun diambil dari tanaman yang sama, tetapi daerah tepi yang hijau yang diberikan oleh L.I ke daun dalam Gambar 3D jauh lebih besar. Pengamatan yang sama mengindikasikan bahwa perkembangan pola daun dan kontribusi lapisan sel apikal yang berbeda ke perkembangan daun tidak dapat dikontrol dengan baik.
Perwujudan Chimera Selain Variegation
Ketika ‘variegation’ merepresentasikan wujud chimera yang sangat terlihat, harus lebih jelas dari pada pembahasan sebelumnya bahwa dalam teori sebuah tanaman dapat menjadi chimera untuk semua sifat. Beberapa chimera yang jarang terjadi meliputi hilangnya pelengkap epidermal (blackberry tanpa duri, pohon persik tanpa bulu), perubahan warna daun pelindung pada ‘Euphorbia pulcherrima’, dan beragam pola warna mahkota pada anyelir dan krisan.
Chimera untuk level ploidi telah dipelajari secara ekstensif pada tanaman buah. Tetraploidi (penggandaan jumlah kromosom normal) menghasilkan buah yang lebih besar dari pada ukuran normalnya ketika sifat ini diletakkan di lapisan L.II dan L.III. Fenomena ini telah dipelajari di apel dan anggur.
Perbanyakan Tanaman Chimera
Chimera meriklinal dan sektorial tidak stabil secara alami dan perbanyakan tanaman untuk menghasilkan anakan yang sama secara morfologis dari tipe ini sangat rendah. Chimera periklinal sangat stabil dan dalam beberapa kasus (seperti pada ‘Chlorophytum variegated’) tanaman chimera paling jarang tersedia untuk diperjualbelikan.
Teknik yang paling sering digunakan untuk perbanyakan tanaman yaitu dalam bentuk chimera periklinal ‘true-to-type’. Ketepatan dalam perbanyakan tumbuh dari fakta bahwa susunan lapisan sel dalam meristem apikal tunas samping identik dengan susunan meristem dari asal tempat terbentuknya. Sehingga lapisan I, II dan III mengkontribusikan sel-sel ke meristem samping yang berdiferensiasi. Stek yang berakar, tunas, sambung pucuk, pembelahan dan perundukan semuanya adalah teknik perbanyakan dengan ketepatan yang tinggi. Permulaan penting dari aturan tersebut ditemukan dalam kasus dimana propagul berdiferensiasi dari tunas adventif. Sebuah kasus yang dibahas sebelumnya yang menggambarkan masalah ini adalah blackberry tanpa duri. Akar adventif yang terbentuk pada stek batang blackberry atau lapisan ujung berasal dari jaringan subepidermis dari batang (L.II dan L.III). Jika potongan akar kemudian diambil dari tanaman ini, tunas adventif tidak mengandung lapisan dengan genotip ‘tak berduri’ (L.I) dan propagulnya adalah tipe yang ‘berduri’.

Seperti pada blackberry berduri, ‘Saintpaulia sp’. juga tidak bisa diperbanyak dengan cara true-to-type melalui stek daun. Tunas yang berasal dari stek daun biasanya berwarna tunggal atau dua warna belang yang tidak beraturan tanpa sifat pola pembungaan. Perbanyakan dengan ketepatan yang tinggi dari ‘Saintpaulia' sp. saat ini diperoleh dengan memisahkan penghisap yang berasal dari tunas samping. Hal ini menggambarkan sifat pola pembungaan lapisan sel dalam meristem apikal.

Pemisahan Chimera dalam Kultur Jaringan
Kultur jaringan tanaman memungkinkan perbanyakan tanaman dari sejumlah sel yang sangat kecil di antara sistem jaringan atau di dalam kasus yang ekstrim, dari sel isolat tunggal (sel protoplas). Ketika diaplikasikan pada tanaman chimera, teknologi kultur jaringan menawarkan sebuah alat yang belum pernah ada sebelumnya untuk ‘mengiris’ atau memisahkan chimera untuk penelitian morfologi dari genotip komponennya. Dengan cara seperti itu, fakta bahwa chimera bisa dipisahkan dengan pembentukan tunas adventif dengan kekacauan yang bersamaan pada susunan sel-sel lapisan apikal menciptakan masalah yang serius jika menggunakan teknik ini untuk perbanyakan klonal yang cepat.
Pengalaman di laboratorium kami telah memperlihatkan bahwa ‘Ajuga reptans’ berproliferasi in vitro dari tunas aksiler dan tunas adventif. Planlet tersebut yang tumbuh dari tunas aksiler adalah fenotip yang normal. Tetapi planlet yang bervariasi juga dihasilkan. Sehingga terdapat dua tipe planlet. Tipe yang sering muncul adalah tipe daun yang berwarna hijau gelap. Tipe yang lain adalah yang sama sekali tidak mengandung klorofil, tampak merah muda di dalam kultur, tetapi gagal mengakar dan tumbuh karena ketidakmampuannya untuk berfotosintesis. Sebagian besar proliferasi terjadi dari perkembangan tunas aksiler karena hampir 70% planlet yang diproduksi adalah ‘true-to-type’.

Ringkasan
Chimera periklinal yang stabiul menghasilkan penampakan tanaman yang unik. Kemampuan untuk memperbanyak tanaman ini dengan cara true-to-type tergantung pada penggunaan teknik propagasi yang memanfaatkan tunas lateral. Organisasi lapisan meristem apikal yang disifati untuk chimera periklinal dikelola dalam meristem lateral, tetapi biasanya hilang selama diferensiasi tunas adventif. Metode kultur jaringan tanaman menyediakan pemisahan genotip chimera dalam beberapa spesies, memfasilitasi penelitian pemisahan komponen genotip. Keuntungan kultur jaringan ini mungkin adalah kecenderungan dalam sistem yang berproliferasi in vitro melalui pembentukan tunas adventif, karena perbanyakan tanaman yang bervariasi mungkin saja terjadi.
Sumber:
http://aggie-horticulture.tamu.edu/tisscult/Chimeras/chimeralec/chimeras.html
Minggu, 15 Maret 2015
Permukaan Sel Tanaman
Permukaan sel tanaman, alga, fungi dan bakteri memiliki beberapa ciri yang sama seperti pada sel hewan, tetapi beberapa diantaranya merupakan sifat yang unik. Pada akhir bab ini, akan diketahui beberapa sifat yang membedakan permukaan sel tanaman dan hewan.
Dinding Sel Menyediakan Rangka Struktur dan Berfungsi Sebagai Barier Permeabel
Salah satu fakta yang paling hebat dari tanaman adalah mereka tidak memiliki tulang atau struktur skeleton, tetapi tetap memiliki kekuatan yang luar biasa. Kekuatan ini diperoleh dari dinding sel yang keras yang mengelilingi semua sel tanaman kecuali sel sperma dan beberapa sel telur. Kekakuan dinding sel membuat pergerakan sel menjadi tidak mungkin. Pada saat yang sama, dinding sel yang kuat membuat sel tanaman mampu menahan tekanan turgor yang besar yang didesak oleh penyerapan air. Tekanan turgor penting untuk tanaman karena menyebabkan banyaknya turgiditas atau kekerasan dari jaringan tanaman dan memberikan tenaga penggerak di belakang ekspansi sel. Dinding yang mengelilingi sebuah sel tanaman juga merupakan barier permeabilitas untuk molekul yang besar, untuk air, gas, ion dan molekul kecil yang larut air seperti gula atau asam amino, dinding sel bukanlah hambatan yang signifikan. Senyawa ini berdifusi melalui dinding sel.
Dinding Sel Tanaman adalah Jaringan Mikrofibril Selulosa, Polisakarida dan Glikoprotein
Seperti matriks ekstrakseluler pada sel hewan, dinding sel tanaman dominannya mengandung serat panjang yang tertanam di dalam sebuah jaringan molekul bercabang. Dinding sel tanaman mengandung mikrofibril selusosa yang terjerat dalam sebuah jaringan kompleks dari polisakarida dan glikoprotein bercabang yang disebut dengan ekstensin. Dua tipe utama polisakarida tersebut adalah hemiselulosa dan pektin.Berat basah selulosa adalah 40% dari berat total dinding sel sedangkan hemiselulosa 20%, pektin 30% dan glikoprotein 10%. Gambar 17-25a mengilustrasikan hubungan antara komponen-komponen penyusun dinding sel tersebut. Selulosa, hemiselulosa dan glikoprotein saling terhubung membentuk jaringan kaku yang saling berhubungan yang tertancap dalam sebuah matriks pektin. Yang tidak tampak adalah lignin, yang pada jaringan tanaman terlokalisasi di antara fibril selulosa dan menyebabkan dinding sel kuat dan kaku.

Selulosa dan Hemiselulosa
Polisakarida utama pada dinding sel adalah selulosa, adalah makromolekul organik yang paling berlimpah di bumi. Seperti yang terlihat dalam Bab III, selulosa adalah polimer tak bercabang yang terdiri atas ribuan unit b-D-glucose yang saling terhubung dengan ikatan b (1 4 ) (Lihat Gambar 3-25). Molekul selulosa adalah struktur yang panjang, seperti pita yang distabilkan oleh ikatan hidrogen intramolekul. Banyak dari molekul tersebut (umumnya antara 50-60) saling terhubung secara lateral membentuk mikrofibril yang ditemukan pada dinding sel. Mikrofibril selulosa seringkali saling berpilin dalam bentuk seperti tali untuk membentuk struktur yang lebih besar, yang disebut makrofibril (Gambar 17-25a). mikrofibril selulosa sama kuatnya dengan baja.
Meskipun namanya mirip, hemiselulosa secara kimia dan struktur berbeda dari selulosa. Hemiselulosa adalah kelompok heterogen polisakarida, masing-masing mengandung rantai lurus panjang dari satu jenis gula (glukosa atau xilosa) dengan rantai samping pendek yang terikat pada jaringan kaku. Rantai samping biasanya mengandung beberapa jenis gula, termasuk glukosa heksosa, galaktosa, manias, xilosa pentosa dan arabinosa.

Komponen Dinding Sel yang Lain
Sebagai tambahan untuk selulosa dan hemiselusosa, dinding sel memiliki beberapa komponen utama lain. Pektin adalah polisakarida bercabang tetapi dengan tulang belakang yang disebut dengan rhamnogalacturonans yang utamanya meliputi asam galakturonik dan rhamnosa yang bermuatan negatif. Rantai samping yang tertempel pada tulang belakang mengandung beberapa monosakarida yang sama yang ditemukan pada hemiselulosa. Molekul pektin membentuk matriks dimanamikrofibril selulosa tertancap (Gambar 17-25a). Molekul pektin juga mengikat dinding sel yang berdekatan sehingga menjadi satu. Karena struktur percabangan dan muatan negatif yang sangat besar, pektin memerangkap dan mengikat molekul air. Sebagai akibatnya, pektin memiliki kekentalan seperti gel. (Karena kapasitasnya membentuk struktur seperti gel, pektin ditambahkan ke jus buah dalam proses pembuatan selai dan jeli buah.) Selain hemiselulosa dan pektin, dinding sel memiliki komponen penyusun yang berhubungan dengan glikopretein, disebut dengan ekstensin.
Meskipun namanya ekstensin, molekul ini sebenarnya kaku dan berbentuk seperti batang yang terjalin dengan erat ke dalam jaringan kompleks polisakarida dinding sel (Gambar 17-25a). faktanya, ekstensin sangat tidak terpisahkan dengan matriks dinding sel sehingga upaya untuk mengekstraknya menyebabkan rusaknya struktur dinding sel. Ekstensin awalnya terdeposit di dalam dinding sel dalam bentuk terlarut. Sekali terdeposit, molekul ekstensin menjadi terhubung silang secara kovalen satu dengan yang lain dan dengan selulosa, membentuk kompleks protein-polisakarida yang kuat. Ekstensin jumlahnya paling sedikit di dalam dinding sel jaringan yang aktif membelah dan paling banyak di dalam dinding sel jaringan yang menyediakan penopang mekanik untuk tanaman. lignin adalah polimer yang sangat tak larut dari alkohol aromatik yang sebagian besar ada di tanaman berkayu. (Kata Latin dari ‘kayu’ adalah lignum.) Molekul lignin terlokalisasi paling banyak di antara fibril selulosa, dimana fungsinya untuk menahan gaya tekan. Lignin menyusun 25% dari berat kering dinding sel, membuatnya sebagai senyawa organik kedua yang paling banyak di bumi setelah selulosa.
Dinding Sel Disintesis dalam Beberapa Tahapan yang Berbeda
Komponen dinding sel tanaman disekresikan dari sel secara bertahap, menciptakan serangkaian lapisan yang disintesis berakhir paling jauh dari membrane plasma. Struktur pertama yang dibuat adalah lamella tengah. Struktur ini digunakan bersama-sama dengan dinding sel tetangga dan mengikat sel yang bersebelahan menjadi satu (Gambar 17-26).

Struktur berikutnya yang dibentuk adalah dinding sel primer, yang terbentuk ketika sel masih tumbuh. Dinding sel primer tebalnya kira-kira 100-200 nm, hanya beberapa kali lebih tebal daripada basal lamina dari sel hewan. Dinding sel primer terdiri atas jaringan microfibril selulosa yang tersusun dengan longgar yang kemudian berhubungan dengan hemiselulosa, pektin, dan glikoprotein (Gambar 17-27a). Mikrofibril selulosa dibuat oleh kompleks enzim pensintesis selulosa yang disebut dengan rosettes yang terlokalisasi di antara membran plasma.

Karena mikrofibril bersauh pada komponen dinding sel yang lain, rosettes harus berpindah dari membran mengikuti pertumbuhan memanjang mikrofibril selulosa. Ketika tunas atau akar tanaman tumbuh, dinding sel harus dirombak.sebuah keluarga protein yang disebut dengan ekspansin membantu dinding sel mempertahankan sifat lunaknya. Suatu cara dimana ekspansin dapat berfungsi, adalah dengan merusak ikatan hidrogen normal glikan di antara mikrofibril dinding sel untuk memungkinkan penyusunan kembali mikrofibril. Susunan dinding sel primer yang longgar menciptakan struktur yang tipis dan fleksibel. Pada beberapa sel tanaman, perkembangan dinding sel tidak berjalan melebihi titik ini. Tetapi, banyak sel yang berhenti tumbuh dan menambahkan lapisan yang lebih tebal dan lebih kaku yang berarti secara kolektif menciptakan dinding sel sekunder (Gambar 17-27b).
Komponen dinding sekunder yang berlapis banyak ditambahkan ke permukaan dalam dinding sel setelah pertumbuhan sel telah berhenti. Selulosa dan lignin adalah unsur primer dinding sekunder, yang membuat strukturnya lebih kuat, lebih keras dan lebih kaku daripada dinding sel primer. Setiap lapisan dinding sel sekunder terdiri atas berkas mikrofibril selulosa yang terbungkus dengan padat, tersusun secara paralel dan terorientasi untuk berbaring pada sebuah sudut pada mikrofibril dari lapisan lain yang berdekatan.
Susunan ini memberikan kekuatan mekanis yang besar dan kekakuan pada dinding sel sekunder. Bersamaan dengan terbentuknya dinding sekunder, mikrotubula terletak di dalam membran plasma dan terorientasi pada arah yang sama seperti mikrofibril selulosa yang baru terbentuk, dan rosettes pensintesis selulosa terkumpul menjadi susunan besar berisi lusinan rosettes. Mikrotubula utama diduga merupakan pemandu gerakan kumpulan rosettes ini, yang mensintesis berkas paralel mikrofibril selulosa besar sepanjang pergerakannya.
Plasmodesmata Memungkinkan Komunikasi Langsung Sel-ke-Sel Melalui Dinding Sel
Karena setiap sel tanaman dikelilingi oleh membran plasma dan dinding sel, kita mungkin ingin tahu bagaimana komunikasi antar sel terjadi seperti halnya pada sel hewan yang diperantarai oleh gap junction. Faktanya, sel tanaman juga memiliki struktur yang fungsinya sama. Seperti yang ditunjukkan pada Gambar 17-28, plasmodesmata (tunggal: plasmodesma) adalah saluran sitoplasmik melalui bukaan yang relatif besar pada dinding sel, memungkinkan keberlanjutan membran plasma dari dua sel yang berdekatan. Setiap plasmodesma dibatasi oleh membran plasma yang bersama-sama digunakan oleh dua sel yang berdekatan. Sebuah plasmodesma bentuknya silindris, yang ukurannya semakin lebar di kedua ujungnya. Diameter saluran bervariasi antara 20-200 nm. Struktur tubuler tunggal, yang disebut dengan desmotubul, biasanya terletak di saluran tengah plasmodesma. Sisterna Retikulum Endoplasma (RE) seringkali terlihat di dekat plasmodesmata pada sisi dinding sel. Membran RE dari sel-sel yang berdekatan terhubung dengan desmotubula dan dengan RE dari sel lain, seperti yang digambarkan pada Gambar 17-28b. Cincin sitoplasma di antara desmotubul dan membran yang melapisi plasmodesma disebut dengan annulus. Annulus diduga menyediakan keberlanjutan sitoplasmik antara sel yang berdekatan, dengan melewatkan molekul secara bebas dari satu sel ke sel yang selanjutnya. Bahkan setelah pembelahan sel dan deposisi dinding sel yang baru di antara dua sel anak, keberlanjutan sitoplasmik dipelihara antara dua sel anak oleh plasmodesmata yang lewat melalui dinding yang baru terbentuk. Kenyataannya, sebagian besar plasmodesmata dibentuk pada saat pembelahan sel, ketika sel baru sedang dibentuk. Perubahan kecil bisa saja terjadi setelahnya, tetapi jumlah dan lokasi plasmodesmata sudah sangat konstan pada saat pembelahan. Berkaitan dengan banyak hal, plasmodesmata muncul untuk berfungsi seperti gap junction. Plasmodesmata mereduksi resistensi elektrik antara sel-sel berdekatan sekitar 50 kali jika dibandingkan dengan sel yang sudah dipisahkan dengan sempurna oleh membran plasma. Pergerakan ion antara sel-sel yang berdekatan (diukur sebagai aliran arus) proporsional terhadap jumlah plasmodesmata yang menghubungkan sel. Meskipun demikian, plasmodesmata memungkinkan lintasan molekul yang jauh lebih besar, termasuk molekul sinyal, RNA, faktor transkripsi dan bahkan virus.

***
Diterjemahkan dari Buku 'Becker's World of The Cell" Edisi Kedelapan, karya Jeff Hardin, Gregory Bertoni dan Lewis J. Kleinsmith. Halaman 497-501.
Dinding Sel Menyediakan Rangka Struktur dan Berfungsi Sebagai Barier Permeabel
Salah satu fakta yang paling hebat dari tanaman adalah mereka tidak memiliki tulang atau struktur skeleton, tetapi tetap memiliki kekuatan yang luar biasa. Kekuatan ini diperoleh dari dinding sel yang keras yang mengelilingi semua sel tanaman kecuali sel sperma dan beberapa sel telur. Kekakuan dinding sel membuat pergerakan sel menjadi tidak mungkin. Pada saat yang sama, dinding sel yang kuat membuat sel tanaman mampu menahan tekanan turgor yang besar yang didesak oleh penyerapan air. Tekanan turgor penting untuk tanaman karena menyebabkan banyaknya turgiditas atau kekerasan dari jaringan tanaman dan memberikan tenaga penggerak di belakang ekspansi sel. Dinding yang mengelilingi sebuah sel tanaman juga merupakan barier permeabilitas untuk molekul yang besar, untuk air, gas, ion dan molekul kecil yang larut air seperti gula atau asam amino, dinding sel bukanlah hambatan yang signifikan. Senyawa ini berdifusi melalui dinding sel.
Dinding Sel Tanaman adalah Jaringan Mikrofibril Selulosa, Polisakarida dan Glikoprotein
Seperti matriks ekstrakseluler pada sel hewan, dinding sel tanaman dominannya mengandung serat panjang yang tertanam di dalam sebuah jaringan molekul bercabang. Dinding sel tanaman mengandung mikrofibril selusosa yang terjerat dalam sebuah jaringan kompleks dari polisakarida dan glikoprotein bercabang yang disebut dengan ekstensin. Dua tipe utama polisakarida tersebut adalah hemiselulosa dan pektin.Berat basah selulosa adalah 40% dari berat total dinding sel sedangkan hemiselulosa 20%, pektin 30% dan glikoprotein 10%. Gambar 17-25a mengilustrasikan hubungan antara komponen-komponen penyusun dinding sel tersebut. Selulosa, hemiselulosa dan glikoprotein saling terhubung membentuk jaringan kaku yang saling berhubungan yang tertancap dalam sebuah matriks pektin. Yang tidak tampak adalah lignin, yang pada jaringan tanaman terlokalisasi di antara fibril selulosa dan menyebabkan dinding sel kuat dan kaku.

Selulosa dan Hemiselulosa
Polisakarida utama pada dinding sel adalah selulosa, adalah makromolekul organik yang paling berlimpah di bumi. Seperti yang terlihat dalam Bab III, selulosa adalah polimer tak bercabang yang terdiri atas ribuan unit b-D-glucose yang saling terhubung dengan ikatan b (1 4 ) (Lihat Gambar 3-25). Molekul selulosa adalah struktur yang panjang, seperti pita yang distabilkan oleh ikatan hidrogen intramolekul. Banyak dari molekul tersebut (umumnya antara 50-60) saling terhubung secara lateral membentuk mikrofibril yang ditemukan pada dinding sel. Mikrofibril selulosa seringkali saling berpilin dalam bentuk seperti tali untuk membentuk struktur yang lebih besar, yang disebut makrofibril (Gambar 17-25a). mikrofibril selulosa sama kuatnya dengan baja.
Meskipun namanya mirip, hemiselulosa secara kimia dan struktur berbeda dari selulosa. Hemiselulosa adalah kelompok heterogen polisakarida, masing-masing mengandung rantai lurus panjang dari satu jenis gula (glukosa atau xilosa) dengan rantai samping pendek yang terikat pada jaringan kaku. Rantai samping biasanya mengandung beberapa jenis gula, termasuk glukosa heksosa, galaktosa, manias, xilosa pentosa dan arabinosa.

Komponen Dinding Sel yang Lain
Sebagai tambahan untuk selulosa dan hemiselusosa, dinding sel memiliki beberapa komponen utama lain. Pektin adalah polisakarida bercabang tetapi dengan tulang belakang yang disebut dengan rhamnogalacturonans yang utamanya meliputi asam galakturonik dan rhamnosa yang bermuatan negatif. Rantai samping yang tertempel pada tulang belakang mengandung beberapa monosakarida yang sama yang ditemukan pada hemiselulosa. Molekul pektin membentuk matriks dimanamikrofibril selulosa tertancap (Gambar 17-25a). Molekul pektin juga mengikat dinding sel yang berdekatan sehingga menjadi satu. Karena struktur percabangan dan muatan negatif yang sangat besar, pektin memerangkap dan mengikat molekul air. Sebagai akibatnya, pektin memiliki kekentalan seperti gel. (Karena kapasitasnya membentuk struktur seperti gel, pektin ditambahkan ke jus buah dalam proses pembuatan selai dan jeli buah.) Selain hemiselulosa dan pektin, dinding sel memiliki komponen penyusun yang berhubungan dengan glikopretein, disebut dengan ekstensin.
Meskipun namanya ekstensin, molekul ini sebenarnya kaku dan berbentuk seperti batang yang terjalin dengan erat ke dalam jaringan kompleks polisakarida dinding sel (Gambar 17-25a). faktanya, ekstensin sangat tidak terpisahkan dengan matriks dinding sel sehingga upaya untuk mengekstraknya menyebabkan rusaknya struktur dinding sel. Ekstensin awalnya terdeposit di dalam dinding sel dalam bentuk terlarut. Sekali terdeposit, molekul ekstensin menjadi terhubung silang secara kovalen satu dengan yang lain dan dengan selulosa, membentuk kompleks protein-polisakarida yang kuat. Ekstensin jumlahnya paling sedikit di dalam dinding sel jaringan yang aktif membelah dan paling banyak di dalam dinding sel jaringan yang menyediakan penopang mekanik untuk tanaman. lignin adalah polimer yang sangat tak larut dari alkohol aromatik yang sebagian besar ada di tanaman berkayu. (Kata Latin dari ‘kayu’ adalah lignum.) Molekul lignin terlokalisasi paling banyak di antara fibril selulosa, dimana fungsinya untuk menahan gaya tekan. Lignin menyusun 25% dari berat kering dinding sel, membuatnya sebagai senyawa organik kedua yang paling banyak di bumi setelah selulosa.
Dinding Sel Disintesis dalam Beberapa Tahapan yang Berbeda
Komponen dinding sel tanaman disekresikan dari sel secara bertahap, menciptakan serangkaian lapisan yang disintesis berakhir paling jauh dari membrane plasma. Struktur pertama yang dibuat adalah lamella tengah. Struktur ini digunakan bersama-sama dengan dinding sel tetangga dan mengikat sel yang bersebelahan menjadi satu (Gambar 17-26).

Struktur berikutnya yang dibentuk adalah dinding sel primer, yang terbentuk ketika sel masih tumbuh. Dinding sel primer tebalnya kira-kira 100-200 nm, hanya beberapa kali lebih tebal daripada basal lamina dari sel hewan. Dinding sel primer terdiri atas jaringan microfibril selulosa yang tersusun dengan longgar yang kemudian berhubungan dengan hemiselulosa, pektin, dan glikoprotein (Gambar 17-27a). Mikrofibril selulosa dibuat oleh kompleks enzim pensintesis selulosa yang disebut dengan rosettes yang terlokalisasi di antara membran plasma.

Karena mikrofibril bersauh pada komponen dinding sel yang lain, rosettes harus berpindah dari membran mengikuti pertumbuhan memanjang mikrofibril selulosa. Ketika tunas atau akar tanaman tumbuh, dinding sel harus dirombak.sebuah keluarga protein yang disebut dengan ekspansin membantu dinding sel mempertahankan sifat lunaknya. Suatu cara dimana ekspansin dapat berfungsi, adalah dengan merusak ikatan hidrogen normal glikan di antara mikrofibril dinding sel untuk memungkinkan penyusunan kembali mikrofibril. Susunan dinding sel primer yang longgar menciptakan struktur yang tipis dan fleksibel. Pada beberapa sel tanaman, perkembangan dinding sel tidak berjalan melebihi titik ini. Tetapi, banyak sel yang berhenti tumbuh dan menambahkan lapisan yang lebih tebal dan lebih kaku yang berarti secara kolektif menciptakan dinding sel sekunder (Gambar 17-27b).
Komponen dinding sekunder yang berlapis banyak ditambahkan ke permukaan dalam dinding sel setelah pertumbuhan sel telah berhenti. Selulosa dan lignin adalah unsur primer dinding sekunder, yang membuat strukturnya lebih kuat, lebih keras dan lebih kaku daripada dinding sel primer. Setiap lapisan dinding sel sekunder terdiri atas berkas mikrofibril selulosa yang terbungkus dengan padat, tersusun secara paralel dan terorientasi untuk berbaring pada sebuah sudut pada mikrofibril dari lapisan lain yang berdekatan.
Susunan ini memberikan kekuatan mekanis yang besar dan kekakuan pada dinding sel sekunder. Bersamaan dengan terbentuknya dinding sekunder, mikrotubula terletak di dalam membran plasma dan terorientasi pada arah yang sama seperti mikrofibril selulosa yang baru terbentuk, dan rosettes pensintesis selulosa terkumpul menjadi susunan besar berisi lusinan rosettes. Mikrotubula utama diduga merupakan pemandu gerakan kumpulan rosettes ini, yang mensintesis berkas paralel mikrofibril selulosa besar sepanjang pergerakannya.
Plasmodesmata Memungkinkan Komunikasi Langsung Sel-ke-Sel Melalui Dinding Sel
Karena setiap sel tanaman dikelilingi oleh membran plasma dan dinding sel, kita mungkin ingin tahu bagaimana komunikasi antar sel terjadi seperti halnya pada sel hewan yang diperantarai oleh gap junction. Faktanya, sel tanaman juga memiliki struktur yang fungsinya sama. Seperti yang ditunjukkan pada Gambar 17-28, plasmodesmata (tunggal: plasmodesma) adalah saluran sitoplasmik melalui bukaan yang relatif besar pada dinding sel, memungkinkan keberlanjutan membran plasma dari dua sel yang berdekatan. Setiap plasmodesma dibatasi oleh membran plasma yang bersama-sama digunakan oleh dua sel yang berdekatan. Sebuah plasmodesma bentuknya silindris, yang ukurannya semakin lebar di kedua ujungnya. Diameter saluran bervariasi antara 20-200 nm. Struktur tubuler tunggal, yang disebut dengan desmotubul, biasanya terletak di saluran tengah plasmodesma. Sisterna Retikulum Endoplasma (RE) seringkali terlihat di dekat plasmodesmata pada sisi dinding sel. Membran RE dari sel-sel yang berdekatan terhubung dengan desmotubula dan dengan RE dari sel lain, seperti yang digambarkan pada Gambar 17-28b. Cincin sitoplasma di antara desmotubul dan membran yang melapisi plasmodesma disebut dengan annulus. Annulus diduga menyediakan keberlanjutan sitoplasmik antara sel yang berdekatan, dengan melewatkan molekul secara bebas dari satu sel ke sel yang selanjutnya. Bahkan setelah pembelahan sel dan deposisi dinding sel yang baru di antara dua sel anak, keberlanjutan sitoplasmik dipelihara antara dua sel anak oleh plasmodesmata yang lewat melalui dinding yang baru terbentuk. Kenyataannya, sebagian besar plasmodesmata dibentuk pada saat pembelahan sel, ketika sel baru sedang dibentuk. Perubahan kecil bisa saja terjadi setelahnya, tetapi jumlah dan lokasi plasmodesmata sudah sangat konstan pada saat pembelahan. Berkaitan dengan banyak hal, plasmodesmata muncul untuk berfungsi seperti gap junction. Plasmodesmata mereduksi resistensi elektrik antara sel-sel berdekatan sekitar 50 kali jika dibandingkan dengan sel yang sudah dipisahkan dengan sempurna oleh membran plasma. Pergerakan ion antara sel-sel yang berdekatan (diukur sebagai aliran arus) proporsional terhadap jumlah plasmodesmata yang menghubungkan sel. Meskipun demikian, plasmodesmata memungkinkan lintasan molekul yang jauh lebih besar, termasuk molekul sinyal, RNA, faktor transkripsi dan bahkan virus.

***
Diterjemahkan dari Buku 'Becker's World of The Cell" Edisi Kedelapan, karya Jeff Hardin, Gregory Bertoni dan Lewis J. Kleinsmith. Halaman 497-501.
Label:
biology,
cell biology,
cell wall
Selasa, 10 Maret 2015
Tali Putri, Si Putri Parasit dari Eropa
Tali Putri berasal dari genus Cuscuta, famili Convolvulaceae. Banyak sekali spesies dari genus ini. Karena siklus kehidupannya yang tidak menarik dan cenderung merugikan (parasit-obligat), Tali Putri jarang dibahas di buku-buku bacaan kuliah. Berikut pembahasan mengenai spesies Cuscuta epithymum, salah satu anggota dari genus ini. Pembahasan ini diterjemahkan secara bebas dari laman http://climbers.lsa.umich.edu/?p=223.
Nama: Cuscuta epithymum Murray
Famili: Convolvulaceae, keluarga bunga morning glory. Beberapa ilmuan menganggapnya sebagai anggota genus Cuscuta yang membentuk famili lain, yaitu Cuscutaceae.
Nama Umum: Clover Dodder, Lesser Clover Dodder, Lesser Dodder, Thyme Dodder. Nama umum untuk genus Cuscuta adalah Dodder, Love Vine, Angel’s Hair, Tangle Gut, Strangle Vine, Devil’s Gut, Witches’ Shoelaces.

Asal Kata: Dalam Bahasa Latin, Cuscuta berarti Dodder (gemetar). Tetapi, Cuscuta diperkirakan oleh beberapa orang memiliki asal kata Arab: “Kushkut.” Julukan tertentu menunjukkan tanaman yang menjadi tempat tumbuhnya Tali Putri: Thyme (timi). Prefiks Bahasa Yunani “epi“ berarti di atas, dan “thymum” adalah Bahasa Latin untuk thyme.
Sinonim : Cuscuta epithymum Sievers ex Ledeb., Cuscuta epithymum Webb & Berthel., Cuscuta epithymum Thuill.,Cuscuta epithymum Bové ex Choisy
Bentuk yang mudah dikenali:
¬ Tidak berdaun, tanaman parasit merambat yang berwarna kemerahan hingga ungu, biasanya ditemukan berserabut di atas inangnya.
¬ Bunganya kecil berwarnya putih hingga merah muda, bahkan kemerahan.
¬ Herbaseus biasanya hidup kurang dari setahun (annual).
¬ Bijinya sangat kecil dan kasar, berwarna abu-abu kusam atau coklat mengkilat.
Tinggi tanaman: Telah dilaporkan bahwa batang dari sebuah tanaman Tali Putri dapat mencapai panjang 804,7 meter jika inangnya cukup besar.
Subspesies/varietas yang diketahui:
C. epithymum var. alba (J. Presl & C. Presl) Trab.
C. epithymum var. angustissima (Engelm.) Yunck.
C. epithymum var. kotschyi (Des Moul.) Engelm.
C. epithymum var. macranthera (Held. & Sartoni) Engelm.
C. epithymum var. obtusata Engelm.
C. epithymum var. rubella (Engelm.) Trab.
C. epithymum var. sagittanthera Engelm.
C. epithymum var. scabrella Engelm.
C. epithymum var. vulgaris Engelm
Yang sering membingungkan: C. epithymum dapat keliru dengan spesies lain dalam genus Cuscuta. Sembilan spesies Cuscuta lain terdapat di Michigan. Di dunia, C. epithymumis seringkali tertukar dengan Cuscuta europea and Cuscuta epilinum, yang paling dekat hubungan kekerabatannya. Dapat juga keliru dengan morning glory (Ipomoea), khususnya spesies yang kecil-bertangkai.
Habitat: C. epithymum paling umum tumbuh pada timi (Thyme), tetapi mungkin juga menjadi parasit pada tanaman lain, seperti alfalfa. C. epithymum paling sering ditemukan dalam areal pertanian di seluruh daerah iklim sedang dan hangat di dunia. Tetapi, telah dilaporkan juga bahwa tanaman ini dapat tumbuh di daerah tropis seperti Fiji and Tahiti. C. epithymum hidup di seluruh dunia dan banyak habitat. Suhu optimal germinasinya di dalam greenhouse adalah 15º C. di bawah kondisi optimal, spesies ini dapat bertahan hidup ketika musim dingin.
Distribusi Geografis di Michigan: C. epithymum didokumentasikan dari Oceana, Calhoun, Hillsdale, Washtenaw, Macomb, dan St. Clair.
Distribusi Elevasional yang Diketahui: Di pegunungan di Perancis, C. epithymum ditemukan hidup di ketinggian 2000m.

Distribusi Geografis Lengkap: Merupakan tanaman asli dari Eropa, Cuscuta epithymum sekarang dapat ditemukan di seluruh dunia. Di Amerika Utara, tanaman ini ditemukan di USA (CA, CT, IA, KY, MA, MD, ME, MI, MO, MT, ND, NE, NJ, NM, NV, NY, OH, OR, PA, RI, SD, VA,VT,WA,WV,WY) dan Kanada (BC, NB, ON). Cuscuta epithymum diketahui sebagai tanaman yang merajalela–khususnya pada legum, di Eropa dan di seluruh dunia. Tanaman ini telah menyebar ke seluruh dunia, dibawa oleh aktivitas perdagangan biji.
Parasitisme: Parasitisme pada tanaman adalah tipe hubungan simbiosis dimana tanaman memperoleh nutrisi langsung dari tanaman lain. Meskipun tanaman parasit umumnya diketahui tidak memiliki klorofil, beberapa spesies memiliki organ berwarna hijau, membuat mereka autotrof sebagian. Kaitan fisik antara parasit dan inang disebut sebagai ‘haustorium’ dan seringkali menciptakan perlekatan ‘xilem-ke-xilem’. Inang parasit bisa beragam, mulai dari tanaman mikoriza hingga rumput dan tanaman berkayu. Parasit seringkali membuka atau sedikit membuka celah stomatanya, yang memungkinkan terjadinya transpirasi untuk tujuan mengekstraksi nutrisi dari inang. Tanaman parasit dapat juga hemiparasit, maksudnya tanaman tersebut juga melakukan fotosintesis dan dapat bertahan hidup sendiri, atau holoparasit, yang berarti tidak bisa berfotosintesis dan tergantung seluruhnya pada inang untuk memenuhi kebutuhan nutrisinya. Biasanya tanaman holoparasit tidak memiliki kloroplas.
Deskripsi Bagian Vegetatif: Selama perkecambahan, kecambahnya, masing-masing dengan akar jangkar kecil, mulai aktif membengkok mengelilingi lingkaran, untuk mencari inang. Sekali kecambah menemukan inang, kecambah itu melekat dan memulai untuk membentuk haustoria. Setelah menemukan inang, akar jangkar mati. Diameter batang Cuscuta epithymum kurang 0.4mm dan beragam warnanya mulai merah hingga ungu gelap. Daun yang sangat kecil mungkin muncul, tetapi tidak berfungsi. Cuscuta epithymum adalah tanaman holoparasit dan tidak melakukan fotosintesis.
Mekanisme Memanjat: Batang Cuscuta epithymum membelit menggunakan batangnya dengan orientasi kanan. Meskipun informasi spesifik mengenai mekanisme pemanjatan Cuscuta epithymum tidak ditemukan, informasi berikut menyinggung genus Cuscuta secara umum. Spesies Cuscuta memanfaatkan dua tipe melingkar: satu dimana lingkarannya erat dengan banyak haustorium, dan yang satu lagi dimana lingkarannya longgar dengan sedikit haustorium. Kedua tipe tersebut mungkin ada pada satu individu tanaman. telah diamati bahwa batang Cuscuta jarang membelit lebih dari 3 kali mengelilingi cabang inang tunggal.

Deskripsi bunga: Bunga kecilnya melekat erat, tidak bebas, tingginya 2-3 mm dari dasar ke sinus korolanya, warnanya putih sampai merah muda dan tersusun dalam tandan. Kaliksnya lebih pendek atau sama dengan tabung korola, lobus korolanya berbentuk triangularis dan runcing. Lima stamennya lebih pendek daripada lobus korola, dengan filamen yang lebih panjang daripada anternya. Bakal buahnya bundar, stigmanya berbentuk oblong, stilus dan stigmanya dua kali lebih panjang dari bakal buahnya.
Waktu Berbunga: Pertengahan Juli hingga Akhir September.
Polinator: Cuscuta epithymum mampu melakukan polinasi sendiri ataupun polinasi silang. Banyak spesies insekta yang berbeda dapat berkontribusi dalam polinasi. Suatu penelitian menunjukkan bahwa semut adalah salah satu pollinator utama, sedangkan penelitian yang lain menyatakan bahwa lebah, kupu-kupu, tawon dan insekta yang lain, secara kolektif dari 8 famili, ikut serta dalam proses polinasi ini.
Tipe Buah dan Deskripsi: buahnya bundar, kapsulnya circumscissile (pecah sepanjang garis melintangnya, sehingga ujungnya terpisah seperti penutup), ditutupi oleh korola yang layu. Buahnya biasanya mengandung 4 biji.

Deskripsi Biji: Bijinya sangat kecil, kira-kira panjangnya 1 mm. Bentuknya kasar, bersiku dan bulat telur pipih. Hilumnya pendek, oblong dan melintang. Bentuk bijinya tergantung pada berapa banyak biji yang berkembang bersama, karena biji-bijinya berkembang berdampingan di dalam bakal buah. Satu tanaman Cuscuta epithymum dilaporkan dapat memproduksi 16.000 biji.
Persebaran Biji: Genus Cuscuta pada umumnya digambarkan sebagai tanaman yang tidak beraturan dalam hal pemencaran biji. Tetapi, perkecambahan biji pada sebagian besar tanaman parasit membutuhkan sinyal dari inang yang cocok; sehingga persebaran biji spesies Cuscuta yang sukses seharusnya memastikan kedekatannya dengan inang yang diinginkan.
Perbedaan dengan Spesies yang Lain: Cuscuta epithymum dapat dibedakan dari Cuscuta europea dengan batangnya yang keunguan dan stamennya yang tidak bebas dan fakta bahwa C. europea tidak tumbuh di Michigan. Cuscuta epithymum dapat dibedakan dari Cuscuta epilinum dengan warna bunganya yang merah muda hingga merah, lobus kaliks yang berbentuk triangular, lobus korola yang tersebar dan termasuk stamen. Meskipun Cuscuta epithymum dapat keliru dengan beberapa spesies batang kecil seperti Ipomoea dan Fallopia, penting untuk dicatat bahwa bunga C. epithymum sangat kecil, sedangkan bunga spesies Ipomoea besar dan bentuknya seperti lonceng. Selain itu, satu sifat yang paling penting dari C. epithymum adalah bahwa spesies ini hanya memiliki daun yang sangat kecil, seperti sisik, dan tidak berfungsi. Sedangkan Ipomoea and Fallopia memiliki daun yang berfungsi dan ukurannya jauh lebih besar.
Anggota Famili Lain yang Tumbuh di Michigan : Calystegia, Convolvulus, Cuscuta dan Ipomoea.
Penggunaan dalam Bidang Etnobotani: Pada abad pertengahan, penggunaan Tali Putri dalam bidang kesehatan dipercaya ditentukan oleh inangnya. C. epithymum seringkali tumbuh di tanaman Timi. Sehingga, karena Timi dianggap – secara figural, bukan secara harfiah – sebuah tanaman yang panas dan kering, dipercaya bahwa C. epithymum adalah obat karena karakternya yang hangat. Selain itu juga dipercaya bahwa ketika ditanam dan dicampur dengan darah anjing atau tanaman lain, C. epithymum dapat membantu seseorang terjaga dari pengaruh roh jahat.
Informasi Filogenetik: Convolvulaceae diletakkan di dalam ordo Solanales. Solanales dan Lamiales adalah sebuah kelompok monofiletik dalam kladus Asterid 1. Di antara Convolvulaceae, ada 3-4 subfamili yang berbeda. Cuscuta termasuk dalam subfamili Convolvuloideae.
Kutipan Menarik atau Fakta Menarik yang Tidak Disebutkan di Atas: Cuscuta memperoleh nama umum “love vine” karena suku asli Amerika, Pawnee, percaya bahwa untuk urusan memilih jodoh, seorang gadis akan memetik bagian dari tanaman tersebut dan membuangnya ke belakang sambil memikirkan seseorang. Jika keesokan harinya tanaman parasit ini dapat menyambungkan dirinya sendiri, itulah tanda bahwa seseorang tersebut akan menjadi pelamar yang baik. Mungkin sama dengan“He loves me, he loves me not” dalam kultur barat.
***
Nama: Cuscuta epithymum Murray
Famili: Convolvulaceae, keluarga bunga morning glory. Beberapa ilmuan menganggapnya sebagai anggota genus Cuscuta yang membentuk famili lain, yaitu Cuscutaceae.
Nama Umum: Clover Dodder, Lesser Clover Dodder, Lesser Dodder, Thyme Dodder. Nama umum untuk genus Cuscuta adalah Dodder, Love Vine, Angel’s Hair, Tangle Gut, Strangle Vine, Devil’s Gut, Witches’ Shoelaces.

Asal Kata: Dalam Bahasa Latin, Cuscuta berarti Dodder (gemetar). Tetapi, Cuscuta diperkirakan oleh beberapa orang memiliki asal kata Arab: “Kushkut.” Julukan tertentu menunjukkan tanaman yang menjadi tempat tumbuhnya Tali Putri: Thyme (timi). Prefiks Bahasa Yunani “epi“ berarti di atas, dan “thymum” adalah Bahasa Latin untuk thyme.
Sinonim : Cuscuta epithymum Sievers ex Ledeb., Cuscuta epithymum Webb & Berthel., Cuscuta epithymum Thuill.,Cuscuta epithymum Bové ex Choisy
Bentuk yang mudah dikenali:
¬ Tidak berdaun, tanaman parasit merambat yang berwarna kemerahan hingga ungu, biasanya ditemukan berserabut di atas inangnya.
¬ Bunganya kecil berwarnya putih hingga merah muda, bahkan kemerahan.
¬ Herbaseus biasanya hidup kurang dari setahun (annual).
¬ Bijinya sangat kecil dan kasar, berwarna abu-abu kusam atau coklat mengkilat.
Tinggi tanaman: Telah dilaporkan bahwa batang dari sebuah tanaman Tali Putri dapat mencapai panjang 804,7 meter jika inangnya cukup besar.
Subspesies/varietas yang diketahui:
C. epithymum var. alba (J. Presl & C. Presl) Trab.
C. epithymum var. angustissima (Engelm.) Yunck.
C. epithymum var. kotschyi (Des Moul.) Engelm.
C. epithymum var. macranthera (Held. & Sartoni) Engelm.
C. epithymum var. obtusata Engelm.
C. epithymum var. rubella (Engelm.) Trab.
C. epithymum var. sagittanthera Engelm.
C. epithymum var. scabrella Engelm.
C. epithymum var. vulgaris Engelm
Yang sering membingungkan: C. epithymum dapat keliru dengan spesies lain dalam genus Cuscuta. Sembilan spesies Cuscuta lain terdapat di Michigan. Di dunia, C. epithymumis seringkali tertukar dengan Cuscuta europea and Cuscuta epilinum, yang paling dekat hubungan kekerabatannya. Dapat juga keliru dengan morning glory (Ipomoea), khususnya spesies yang kecil-bertangkai.
Habitat: C. epithymum paling umum tumbuh pada timi (Thyme), tetapi mungkin juga menjadi parasit pada tanaman lain, seperti alfalfa. C. epithymum paling sering ditemukan dalam areal pertanian di seluruh daerah iklim sedang dan hangat di dunia. Tetapi, telah dilaporkan juga bahwa tanaman ini dapat tumbuh di daerah tropis seperti Fiji and Tahiti. C. epithymum hidup di seluruh dunia dan banyak habitat. Suhu optimal germinasinya di dalam greenhouse adalah 15º C. di bawah kondisi optimal, spesies ini dapat bertahan hidup ketika musim dingin.
Distribusi Geografis di Michigan: C. epithymum didokumentasikan dari Oceana, Calhoun, Hillsdale, Washtenaw, Macomb, dan St. Clair.
Distribusi Elevasional yang Diketahui: Di pegunungan di Perancis, C. epithymum ditemukan hidup di ketinggian 2000m.

Distribusi Geografis Lengkap: Merupakan tanaman asli dari Eropa, Cuscuta epithymum sekarang dapat ditemukan di seluruh dunia. Di Amerika Utara, tanaman ini ditemukan di USA (CA, CT, IA, KY, MA, MD, ME, MI, MO, MT, ND, NE, NJ, NM, NV, NY, OH, OR, PA, RI, SD, VA,VT,WA,WV,WY) dan Kanada (BC, NB, ON). Cuscuta epithymum diketahui sebagai tanaman yang merajalela–khususnya pada legum, di Eropa dan di seluruh dunia. Tanaman ini telah menyebar ke seluruh dunia, dibawa oleh aktivitas perdagangan biji.
Parasitisme: Parasitisme pada tanaman adalah tipe hubungan simbiosis dimana tanaman memperoleh nutrisi langsung dari tanaman lain. Meskipun tanaman parasit umumnya diketahui tidak memiliki klorofil, beberapa spesies memiliki organ berwarna hijau, membuat mereka autotrof sebagian. Kaitan fisik antara parasit dan inang disebut sebagai ‘haustorium’ dan seringkali menciptakan perlekatan ‘xilem-ke-xilem’. Inang parasit bisa beragam, mulai dari tanaman mikoriza hingga rumput dan tanaman berkayu. Parasit seringkali membuka atau sedikit membuka celah stomatanya, yang memungkinkan terjadinya transpirasi untuk tujuan mengekstraksi nutrisi dari inang. Tanaman parasit dapat juga hemiparasit, maksudnya tanaman tersebut juga melakukan fotosintesis dan dapat bertahan hidup sendiri, atau holoparasit, yang berarti tidak bisa berfotosintesis dan tergantung seluruhnya pada inang untuk memenuhi kebutuhan nutrisinya. Biasanya tanaman holoparasit tidak memiliki kloroplas.
Deskripsi Bagian Vegetatif: Selama perkecambahan, kecambahnya, masing-masing dengan akar jangkar kecil, mulai aktif membengkok mengelilingi lingkaran, untuk mencari inang. Sekali kecambah menemukan inang, kecambah itu melekat dan memulai untuk membentuk haustoria. Setelah menemukan inang, akar jangkar mati. Diameter batang Cuscuta epithymum kurang 0.4mm dan beragam warnanya mulai merah hingga ungu gelap. Daun yang sangat kecil mungkin muncul, tetapi tidak berfungsi. Cuscuta epithymum adalah tanaman holoparasit dan tidak melakukan fotosintesis.
Mekanisme Memanjat: Batang Cuscuta epithymum membelit menggunakan batangnya dengan orientasi kanan. Meskipun informasi spesifik mengenai mekanisme pemanjatan Cuscuta epithymum tidak ditemukan, informasi berikut menyinggung genus Cuscuta secara umum. Spesies Cuscuta memanfaatkan dua tipe melingkar: satu dimana lingkarannya erat dengan banyak haustorium, dan yang satu lagi dimana lingkarannya longgar dengan sedikit haustorium. Kedua tipe tersebut mungkin ada pada satu individu tanaman. telah diamati bahwa batang Cuscuta jarang membelit lebih dari 3 kali mengelilingi cabang inang tunggal.

Deskripsi bunga: Bunga kecilnya melekat erat, tidak bebas, tingginya 2-3 mm dari dasar ke sinus korolanya, warnanya putih sampai merah muda dan tersusun dalam tandan. Kaliksnya lebih pendek atau sama dengan tabung korola, lobus korolanya berbentuk triangularis dan runcing. Lima stamennya lebih pendek daripada lobus korola, dengan filamen yang lebih panjang daripada anternya. Bakal buahnya bundar, stigmanya berbentuk oblong, stilus dan stigmanya dua kali lebih panjang dari bakal buahnya.
Waktu Berbunga: Pertengahan Juli hingga Akhir September.
Polinator: Cuscuta epithymum mampu melakukan polinasi sendiri ataupun polinasi silang. Banyak spesies insekta yang berbeda dapat berkontribusi dalam polinasi. Suatu penelitian menunjukkan bahwa semut adalah salah satu pollinator utama, sedangkan penelitian yang lain menyatakan bahwa lebah, kupu-kupu, tawon dan insekta yang lain, secara kolektif dari 8 famili, ikut serta dalam proses polinasi ini.
Tipe Buah dan Deskripsi: buahnya bundar, kapsulnya circumscissile (pecah sepanjang garis melintangnya, sehingga ujungnya terpisah seperti penutup), ditutupi oleh korola yang layu. Buahnya biasanya mengandung 4 biji.

Deskripsi Biji: Bijinya sangat kecil, kira-kira panjangnya 1 mm. Bentuknya kasar, bersiku dan bulat telur pipih. Hilumnya pendek, oblong dan melintang. Bentuk bijinya tergantung pada berapa banyak biji yang berkembang bersama, karena biji-bijinya berkembang berdampingan di dalam bakal buah. Satu tanaman Cuscuta epithymum dilaporkan dapat memproduksi 16.000 biji.
Persebaran Biji: Genus Cuscuta pada umumnya digambarkan sebagai tanaman yang tidak beraturan dalam hal pemencaran biji. Tetapi, perkecambahan biji pada sebagian besar tanaman parasit membutuhkan sinyal dari inang yang cocok; sehingga persebaran biji spesies Cuscuta yang sukses seharusnya memastikan kedekatannya dengan inang yang diinginkan.
Perbedaan dengan Spesies yang Lain: Cuscuta epithymum dapat dibedakan dari Cuscuta europea dengan batangnya yang keunguan dan stamennya yang tidak bebas dan fakta bahwa C. europea tidak tumbuh di Michigan. Cuscuta epithymum dapat dibedakan dari Cuscuta epilinum dengan warna bunganya yang merah muda hingga merah, lobus kaliks yang berbentuk triangular, lobus korola yang tersebar dan termasuk stamen. Meskipun Cuscuta epithymum dapat keliru dengan beberapa spesies batang kecil seperti Ipomoea dan Fallopia, penting untuk dicatat bahwa bunga C. epithymum sangat kecil, sedangkan bunga spesies Ipomoea besar dan bentuknya seperti lonceng. Selain itu, satu sifat yang paling penting dari C. epithymum adalah bahwa spesies ini hanya memiliki daun yang sangat kecil, seperti sisik, dan tidak berfungsi. Sedangkan Ipomoea and Fallopia memiliki daun yang berfungsi dan ukurannya jauh lebih besar.
Anggota Famili Lain yang Tumbuh di Michigan : Calystegia, Convolvulus, Cuscuta dan Ipomoea.
Penggunaan dalam Bidang Etnobotani: Pada abad pertengahan, penggunaan Tali Putri dalam bidang kesehatan dipercaya ditentukan oleh inangnya. C. epithymum seringkali tumbuh di tanaman Timi. Sehingga, karena Timi dianggap – secara figural, bukan secara harfiah – sebuah tanaman yang panas dan kering, dipercaya bahwa C. epithymum adalah obat karena karakternya yang hangat. Selain itu juga dipercaya bahwa ketika ditanam dan dicampur dengan darah anjing atau tanaman lain, C. epithymum dapat membantu seseorang terjaga dari pengaruh roh jahat.
Informasi Filogenetik: Convolvulaceae diletakkan di dalam ordo Solanales. Solanales dan Lamiales adalah sebuah kelompok monofiletik dalam kladus Asterid 1. Di antara Convolvulaceae, ada 3-4 subfamili yang berbeda. Cuscuta termasuk dalam subfamili Convolvuloideae.
Kutipan Menarik atau Fakta Menarik yang Tidak Disebutkan di Atas: Cuscuta memperoleh nama umum “love vine” karena suku asli Amerika, Pawnee, percaya bahwa untuk urusan memilih jodoh, seorang gadis akan memetik bagian dari tanaman tersebut dan membuangnya ke belakang sambil memikirkan seseorang. Jika keesokan harinya tanaman parasit ini dapat menyambungkan dirinya sendiri, itulah tanda bahwa seseorang tersebut akan menjadi pelamar yang baik. Mungkin sama dengan“He loves me, he loves me not” dalam kultur barat.
***
Label:
agriculture,
biology,
plant morphology,
plant parasite
Selasa, 03 Maret 2015
Pengukuran Cahaya dalam Fisiologi Tanaman
Bekerja dengan Cahaya
Tiga sifat cahaya berikut penting ketika bekerja dengan cahaya: (1) jumlah, (2) arah, dan (3) kualitas spektrum. Dua parameter yang pertama, jumlah dan arah, penting dalam hal bentuk bagian tanaman yang menangkap cahaya. Apakah bagian tanaman tersebut datar atau silindris? Untuk daun yang datar, sensor cahaya yang datar adalah yang paling sesuai, dan jumlah energi yang jatuh di atas sensor datar dari daerah yang diketahui per satuan waktu diukur sebagai iradiansi. Satuannya dapat dinyatakan sebagai energi, seperti misalnya Watt per meter persegi (W.m^-2). Waktu (sekon) termasuk di dalam istilah Watt: 1 W = 1 Joule J.s^-1. Energi foton tergantung pada frekuensinya, seperti yang dinyatakan oleh Hukum Planck.
 Table 9.1.A Concepts and units for the quantification of light.
Jumlah cahaya. Ketika diasumsikan sebagai gelombang, cahaya memiliki panjang gelombang dan frekuensi. Cahaya dapat juga dianalogikan sebagai aliran partikel, foton atau quantum. Dalam hal ini, setiap satuannya dapat dinyatakan dalam mol per meter persegi per detik (mol.m^-2.s^-1), dimana ‘mol’ adalah jumlah foton (1 mol cahaya = 6,02 x 10^23 foton, bilangan Avogadro). Pengukuran ini disebut dengan iradiansi foton.
Satuan quantum dan energi dapat saling dikonversikan, sehingga panjang gelombang cahaya dapat diketahui. Energi sebuah foton berhubungan dengan panjang gelombangnya:

Dimana c adalah kecepatan cahaya (3 x 10^8 m.s^-1), h adalah konstanta Plank (6,63 x 10^-34 J.s), dan λ adalah panjang gelombang cahaya, biasanya dinyatakan dalam nm (1nm = 10^-9 m). Kita dapat memecahkan bagian h.λ dari rumus tersebut, dan kita peroleh 1.988 x 10^-16, dan rumusnya ditulis sebagai berikut:

dimana λ dinyatakan dalam nanometer. Dari rumus tersebut kita dapat melihat bahwa sebuah foton pada panjang gelombang 400 nm, yang terdapat di dalam daerah biru di dalam spektrum, memiliki energi dua kali lipat daripada sebuah foton pada panjang gelombang 800 nm. Sebuah foton pada panjang gelombang 400 nm cahaya mengandung 4,97 x 10^-19 J. sedangkan foton pada panjang gelombang 800 nm mengandung 2,48 x 10^-19 J. Dengan kata lain, semakin besar panjang gelombang sebuah foton, semakin rendah energinya, seperti yang diindikasikan oleh denominator yang lebih besar pada rumus.
Sekarang, misalkan kita memiliki 3 µmol dari 400 nm cahaya yang jatuh pada area 1 meter persegi setiap detik, atau sebuah iradiansi foton 3 µmol m^–2 s^–1. Kuantitas ini kira-kira sejumlah cahaya biru pada panjang gelombang 400 nm yang menyentuh permukaan bumi pada hari yang cerah. Jika kita ingin mengkonversi iradiansi foton menjadi iradiansi energi, kita harus terlebih dahulu mengkonversi mikromol menjadi mol (1 µmol = 10^–6 mol): (3 µmol m^–2 s^–1) × (10^–6 mol µmol^–1) = 3 × 10^–6 mol.m^–2.s^–1 foton atau quantum. Dengan mengkalkulasi jumlah quantum dari bilangan Avogadro akan menghasilkan (3 × 10^–6 mol quanta m^–2.s^–1) × (6,02 × 10^23 quanta mol^–1) = 1,8 × 10^18 quanta m^–2.s^–1. Seperti yang telah kita hitung, setiap foton, atau quantum dari 400nm cahaya mengandung 4,97 × 10^–19 J. Sehingga (4,97 × 10^–19 J.quantum^–1) × (1,8 × 10^18 quanta.m^–2.s^–1) = 0,9 J.s^–1.m^–2. Karena 1 J.s^–1 = 1 W, kita memperoleh iradiansi 0,9 W.m^-2.
Arah cahaya. Mari memindahkan perhatian kita pada arah cahaya, cahaya dapat menyentuh permukaan yang datar secara langsung dari atas atau dengan arah serong. Ketika cahaya berdeviasi dari arah yang tegak lurus, iradiansi sebanding dengan cos dari sudut dimana sorot cahaya menyentuh sensor (Gambar 9.1.A). Sehingga, iradiansi dapat maksimal jika cahaya menyentuh permukaan langsung dari atas, dan semakin menurun jika cahayanya lebih miring - sama seperti pada daun. Sensor yang baik untuk sudut datang cahaya disebut dengan cos yang dikoreksi.
 Web Figure 9.1.A Irradiance and fluence rate. Equivalent amounts of collimated light strike a flat irradiance-type sensor (A) and a spherical sensor (B) that measure fluence rate. With collimated light, A and B will give the same light readings. When the light direction is changed 45°, the spherical sensor (D) will measure the same quantity as in B. In contrast, the flat irradiance sensor (C) will measure an amount equivalent to the irradiance in A multiplied by cosine of the angle α in C. (After Björn and Vogelmann 1994.)
Ada banyak contoh di alam dimana benda penerima cahaya tidak datar (misalnya ujung tunas, tanaman utuh dan kloroplas). Selain itu, pada beberapa situasi, cahaya bisa datang dari beberapa arah sekaligus (misalnya cahaya langsung dari matahari dan cahaya yang dipantulkan oleh tanah, pasir atau salju). Pada situasi tersebut, lebih masuk akal untuk mengukur cahaya dengan sensor bulat yang mengukur cahaya secara omnidireksi (dari berbagai arah).
Ketika jumlah cahaya diukur dengan pengukur omnidireksi, tipe pengukurannya disebut dengan fluence rate (Rpert and Letarjet ,1978), dan jumlah cahaya yang terukur dapat dinyatakan dalam Watt per meter persegi (W.m^-2) atau mol per meter persegi per sekon (mol.m^-2.s^-1). Sudah jelaslah dari satuan tersebut bahwa cahaya dapat diukur sebagai energi (W) atau foton (mol).
Kebalikan dari sensor datar, sensor bulat sama sensitifnya pada cahaya dari berbagai arah (Gambar 9.1.A). Tergantung pada apakah cahayanya paralel atau datang dengan tidak teratur, nilai fluence rate dibandingkan dengan iradiansinya bisa sangat berbeda. Keduanya bisa ekuivalen hanya pada kondisi tertentu.
Pengukuran sensor datar dari radiasi aktif fotosintesis (Photosynthetic Active Radiation, 400-700 nm) juga dapat dinyatakan dengan energi (W.m^-2) atau quantum (mol.m^-2.s^-1) (McCree, 1981). Penting untuk diingat bahwa PAR adalah tipe pengukuran iradiansi. Dalam penelitian fotosintesis, ketika PAR dinyatakan dalam quantum, biasaya diberikan istilah khusus photosynthetic photon flux density (PPFD). Tetapi, disarankan bahwa istilah ‘densitas’ tidak digunakan lagi (Holmes et al, 1985) karena diantara Sistem Internasional Unit, densitas dapat berarti area atau volum. Selain itu, area terkandung di dalam istilah flux. PPFD telah dipendekkan menjadi PPF dalam beberapa kasus, tetapi tidak jelas apakah kependekan tersebut mewakili tipe pengukuran iradiansi ataukah sperikal.
Ketika cahaya berpindah dari air seperti danau atau lautan, cahaya tersebut berhamburan sehingga arahnya tidak teratur. Sebagai akibatnya, organisme fotosintetik air dapat menerima cahaya secara serentak dari atas, bawah dan sisi-sisinya. Dalam oseanografi dan limnologi, cahaya yang melintas dari permukaan air ke dasar disebut downwelling irradiance, dan cahaya yang melintas dari arah sebaliknya disebut upwelling irradiance.
Sebelum light meter khusus dibuat untuk fisiologi tanaman, cahaya diukur dalam lux atau foot-candles. Pengukuran ini berdasarkan pada persepsi cahaya oleh mata manusia, yang maksimal sensitif pada cahaya di daerah hijau pada spektrum, yaitu pada panjang gelombang 555 nm. Sensitifitas turun pada kedua sisi panjang gelombang tersebut dan mencapai 0 diantara biru dan merah, panjang gelombang yang penting untuk fotosintesis. Sehingga lux dan foot-candles jarang digunakan dalam fisiologi tanaman. Satuan ini dapat dikonversi menjadi satuan iradiansi dan fluence rate, tetapi hanya jika kualitas cahaya secara detail diketahui, sesuatu yang hanya bisa diperoleh dengan alat spektroradiometer, yang mengukur jumlah cahaya pada setiap panjang gelombang.
Ringkasnya, ketika memilih bagaimana menghitung cahaya, penting untuk memencocokkan bentuk sensor dan respon spektrum dengan tanaman. Sensor datar, dengan cos yang dikoreksi, cocok untuk mengukur jumlah cahaya yang jatuh pada daun; sensor bulat lebih cocok untuk keadaan yang lain, misalnya ketika mempelajari suspensi kloroplas atau cabang dari sebuah pohon.
Berapa banyak cahaya pada siang hari yang cerah dan apa hubungan antara iradiansi PAR dan PAR fluence rate? Di bawah sinar matahari langsung, iradiansi PAR dan fluence rate nilainya sama, yaitu sekitar 2000 µmol.m^–2.s^–1, meskipun nilai yang lebih tinggi mungkin saja bisa terukur pada daerah yang lebih tinggi. Nilai yang sesuai dalam satuan energi kira-kira 400 W.m^-2. Ketika cahaya tersebar, iradiansinya hanya 0,25 kali nilai fluence rate-nya.
Sumber: http://5e.plantphys.net/article.php?ch=t&id=131
Tiga sifat cahaya berikut penting ketika bekerja dengan cahaya: (1) jumlah, (2) arah, dan (3) kualitas spektrum. Dua parameter yang pertama, jumlah dan arah, penting dalam hal bentuk bagian tanaman yang menangkap cahaya. Apakah bagian tanaman tersebut datar atau silindris? Untuk daun yang datar, sensor cahaya yang datar adalah yang paling sesuai, dan jumlah energi yang jatuh di atas sensor datar dari daerah yang diketahui per satuan waktu diukur sebagai iradiansi. Satuannya dapat dinyatakan sebagai energi, seperti misalnya Watt per meter persegi (W.m^-2). Waktu (sekon) termasuk di dalam istilah Watt: 1 W = 1 Joule J.s^-1. Energi foton tergantung pada frekuensinya, seperti yang dinyatakan oleh Hukum Planck.

Jumlah cahaya. Ketika diasumsikan sebagai gelombang, cahaya memiliki panjang gelombang dan frekuensi. Cahaya dapat juga dianalogikan sebagai aliran partikel, foton atau quantum. Dalam hal ini, setiap satuannya dapat dinyatakan dalam mol per meter persegi per detik (mol.m^-2.s^-1), dimana ‘mol’ adalah jumlah foton (1 mol cahaya = 6,02 x 10^23 foton, bilangan Avogadro). Pengukuran ini disebut dengan iradiansi foton.
Satuan quantum dan energi dapat saling dikonversikan, sehingga panjang gelombang cahaya dapat diketahui. Energi sebuah foton berhubungan dengan panjang gelombangnya:

Dimana c adalah kecepatan cahaya (3 x 10^8 m.s^-1), h adalah konstanta Plank (6,63 x 10^-34 J.s), dan λ adalah panjang gelombang cahaya, biasanya dinyatakan dalam nm (1nm = 10^-9 m). Kita dapat memecahkan bagian h.λ dari rumus tersebut, dan kita peroleh 1.988 x 10^-16, dan rumusnya ditulis sebagai berikut:

dimana λ dinyatakan dalam nanometer. Dari rumus tersebut kita dapat melihat bahwa sebuah foton pada panjang gelombang 400 nm, yang terdapat di dalam daerah biru di dalam spektrum, memiliki energi dua kali lipat daripada sebuah foton pada panjang gelombang 800 nm. Sebuah foton pada panjang gelombang 400 nm cahaya mengandung 4,97 x 10^-19 J. sedangkan foton pada panjang gelombang 800 nm mengandung 2,48 x 10^-19 J. Dengan kata lain, semakin besar panjang gelombang sebuah foton, semakin rendah energinya, seperti yang diindikasikan oleh denominator yang lebih besar pada rumus.
Sekarang, misalkan kita memiliki 3 µmol dari 400 nm cahaya yang jatuh pada area 1 meter persegi setiap detik, atau sebuah iradiansi foton 3 µmol m^–2 s^–1. Kuantitas ini kira-kira sejumlah cahaya biru pada panjang gelombang 400 nm yang menyentuh permukaan bumi pada hari yang cerah. Jika kita ingin mengkonversi iradiansi foton menjadi iradiansi energi, kita harus terlebih dahulu mengkonversi mikromol menjadi mol (1 µmol = 10^–6 mol): (3 µmol m^–2 s^–1) × (10^–6 mol µmol^–1) = 3 × 10^–6 mol.m^–2.s^–1 foton atau quantum. Dengan mengkalkulasi jumlah quantum dari bilangan Avogadro akan menghasilkan (3 × 10^–6 mol quanta m^–2.s^–1) × (6,02 × 10^23 quanta mol^–1) = 1,8 × 10^18 quanta m^–2.s^–1. Seperti yang telah kita hitung, setiap foton, atau quantum dari 400nm cahaya mengandung 4,97 × 10^–19 J. Sehingga (4,97 × 10^–19 J.quantum^–1) × (1,8 × 10^18 quanta.m^–2.s^–1) = 0,9 J.s^–1.m^–2. Karena 1 J.s^–1 = 1 W, kita memperoleh iradiansi 0,9 W.m^-2.
Arah cahaya. Mari memindahkan perhatian kita pada arah cahaya, cahaya dapat menyentuh permukaan yang datar secara langsung dari atas atau dengan arah serong. Ketika cahaya berdeviasi dari arah yang tegak lurus, iradiansi sebanding dengan cos dari sudut dimana sorot cahaya menyentuh sensor (Gambar 9.1.A). Sehingga, iradiansi dapat maksimal jika cahaya menyentuh permukaan langsung dari atas, dan semakin menurun jika cahayanya lebih miring - sama seperti pada daun. Sensor yang baik untuk sudut datang cahaya disebut dengan cos yang dikoreksi.

Ada banyak contoh di alam dimana benda penerima cahaya tidak datar (misalnya ujung tunas, tanaman utuh dan kloroplas). Selain itu, pada beberapa situasi, cahaya bisa datang dari beberapa arah sekaligus (misalnya cahaya langsung dari matahari dan cahaya yang dipantulkan oleh tanah, pasir atau salju). Pada situasi tersebut, lebih masuk akal untuk mengukur cahaya dengan sensor bulat yang mengukur cahaya secara omnidireksi (dari berbagai arah).
Ketika jumlah cahaya diukur dengan pengukur omnidireksi, tipe pengukurannya disebut dengan fluence rate (Rpert and Letarjet ,1978), dan jumlah cahaya yang terukur dapat dinyatakan dalam Watt per meter persegi (W.m^-2) atau mol per meter persegi per sekon (mol.m^-2.s^-1). Sudah jelaslah dari satuan tersebut bahwa cahaya dapat diukur sebagai energi (W) atau foton (mol).
Kebalikan dari sensor datar, sensor bulat sama sensitifnya pada cahaya dari berbagai arah (Gambar 9.1.A). Tergantung pada apakah cahayanya paralel atau datang dengan tidak teratur, nilai fluence rate dibandingkan dengan iradiansinya bisa sangat berbeda. Keduanya bisa ekuivalen hanya pada kondisi tertentu.
Pengukuran sensor datar dari radiasi aktif fotosintesis (Photosynthetic Active Radiation, 400-700 nm) juga dapat dinyatakan dengan energi (W.m^-2) atau quantum (mol.m^-2.s^-1) (McCree, 1981). Penting untuk diingat bahwa PAR adalah tipe pengukuran iradiansi. Dalam penelitian fotosintesis, ketika PAR dinyatakan dalam quantum, biasaya diberikan istilah khusus photosynthetic photon flux density (PPFD). Tetapi, disarankan bahwa istilah ‘densitas’ tidak digunakan lagi (Holmes et al, 1985) karena diantara Sistem Internasional Unit, densitas dapat berarti area atau volum. Selain itu, area terkandung di dalam istilah flux. PPFD telah dipendekkan menjadi PPF dalam beberapa kasus, tetapi tidak jelas apakah kependekan tersebut mewakili tipe pengukuran iradiansi ataukah sperikal.
Ketika cahaya berpindah dari air seperti danau atau lautan, cahaya tersebut berhamburan sehingga arahnya tidak teratur. Sebagai akibatnya, organisme fotosintetik air dapat menerima cahaya secara serentak dari atas, bawah dan sisi-sisinya. Dalam oseanografi dan limnologi, cahaya yang melintas dari permukaan air ke dasar disebut downwelling irradiance, dan cahaya yang melintas dari arah sebaliknya disebut upwelling irradiance.
Sebelum light meter khusus dibuat untuk fisiologi tanaman, cahaya diukur dalam lux atau foot-candles. Pengukuran ini berdasarkan pada persepsi cahaya oleh mata manusia, yang maksimal sensitif pada cahaya di daerah hijau pada spektrum, yaitu pada panjang gelombang 555 nm. Sensitifitas turun pada kedua sisi panjang gelombang tersebut dan mencapai 0 diantara biru dan merah, panjang gelombang yang penting untuk fotosintesis. Sehingga lux dan foot-candles jarang digunakan dalam fisiologi tanaman. Satuan ini dapat dikonversi menjadi satuan iradiansi dan fluence rate, tetapi hanya jika kualitas cahaya secara detail diketahui, sesuatu yang hanya bisa diperoleh dengan alat spektroradiometer, yang mengukur jumlah cahaya pada setiap panjang gelombang.
Ringkasnya, ketika memilih bagaimana menghitung cahaya, penting untuk memencocokkan bentuk sensor dan respon spektrum dengan tanaman. Sensor datar, dengan cos yang dikoreksi, cocok untuk mengukur jumlah cahaya yang jatuh pada daun; sensor bulat lebih cocok untuk keadaan yang lain, misalnya ketika mempelajari suspensi kloroplas atau cabang dari sebuah pohon.
Berapa banyak cahaya pada siang hari yang cerah dan apa hubungan antara iradiansi PAR dan PAR fluence rate? Di bawah sinar matahari langsung, iradiansi PAR dan fluence rate nilainya sama, yaitu sekitar 2000 µmol.m^–2.s^–1, meskipun nilai yang lebih tinggi mungkin saja bisa terukur pada daerah yang lebih tinggi. Nilai yang sesuai dalam satuan energi kira-kira 400 W.m^-2. Ketika cahaya tersebar, iradiansinya hanya 0,25 kali nilai fluence rate-nya.
Sumber: http://5e.plantphys.net/article.php?ch=t&id=131
Label:
biology,
fluence rate,
irradiance,
light meter,
plant physiology,
spectrum
Langganan:
Postingan (Atom)